שינויים בקישוריות המוח במהלך השינה על ידי גירוי טרנסגולגולתי טרנסגולגולתי סגור לחזות רגישות מטאזיכרון חלק 3
May 17, 2024
תוצאות
השפעות התנהגותיות
כפי שדווח על ידי Pilly et al. (2020), גירוי STAMP לא הוביל לשיפור משמעותי ברמת הדיוק הכוללת של זכירת הזיכרון. עם זאת, גירוי STAMP הוביל לשיפור רגישות המטא-זיכרון ביום 3 של הניסוי (לאחר לילה 2).
רגישות מטא-זיכרון מתייחסת למודעות והבנתו של אדם ליכולת הזיכרון שברשותו, בעוד שיכולת הזיכרון מתייחסת ליכולת הזיכרון של האדם המופגנת בתרגול ספציפי. יש קשר הדוק בין השניים.
ראשית, רגישות מטא-זיכרון משפיעה ישירות על ביצועי הזיכרון. אם אדם מאמין שהוא או היא בטוחים לגבי סוג מסוים של זיכרון, הוא או היא נוטים לעבוד קשה יותר כדי לזכור אותו ולבצע טוב יותר במשימת זיכרון מסוג זה. לעומת זאת, אם לאדם חסר ביטחון ביכולות הזיכרון שלו, זה עלול לגרום לו לבצע פחות טוב במשימות זיכרון, ובכך להפחית את יכולת הזיכרון שלו.
שנית, רגישות מטא-זיכרון חיובית עוזרת לשפר את הזיכרון. אם אדם מאמין שיש מקום לשיפור ביכולת הזיכרון שלו, הוא יהיה פעיל יותר באימון יכולת הזיכרון שלו, ובכך ישפר את הדיוק וההתמדה של הזיכרון. אלו שמאמינים שיכולת הזיכרון שלהם הגיעה לשיא, לרוב לא מסוגלים לקבל אתגרי זיכרון חדשים ובכך מפספסים את ההזדמנות לשפר את יכולת הזיכרון.
לכן, עלינו לטפח באופן אקטיבי את רגישות המטא-זיכרון שלנו, לשבור את ההגבלות וההגדרות של יכולות הזיכרון שלנו, ולהאמין שנוכל להמשיך ולהשתפר במשימות הזיכרון. יחד עם זאת, עלינו להסתמך גם על אימון ותרגול מצטבר כדי לשפר את יכולת הזיכרון שלנו כך שניתן יהיה להשתמש בו בצורה יעילה יותר בתרגול ספציפי. רק כך נוכל למקסם את פוטנציאל הזיכרון שלנו ולהגיע לתוצאות טובות יותר. ניתן לראות שאנו צריכים לשפר את הזיכרון, ו-Cistanche deserticola יכולה לשפר משמעותית את הזיכרון, מכיוון ש-Cistanche deserticola יכולה לווסת גם את איזון הנוירוטרנסמיטורים, כמו הגדלת רמות האצטילכולין וגורמי גדילה. חומרים אלו חשובים מאוד לזיכרון וללמידה. בנוסף, Cistanche deserticola יכולה גם לשפר את זרימת הדם ולקדם מתן חמצן, מה שיכול להבטיח שהמוח יקבל מספיק חומרים מזינים ואנרגיה, ובכך לשפר את חיוניות המוח וסיבולת.

לחץ על יודע תוספי מזון כדי לשפר את הזיכרון
באופן ספציפי, מבחני t תלויים שהשוו רגישות מטא-זיכרון בין תנאים גילו שהרגישות בתנאי Tag & Cue הייתה גדולה משמעותית הן מתנאי ה-Tag והן ללא Cue [t(23)=3.51,adjusted p < 0 .01, תיקון Holm–Bonferroni לשתי השוואות; Paired-sample Cohen'sd=0.72] ו-Sham condition [t(23)=2.089, מותאם p=0.048, תיקון Holm–Bonferroni לשתי השוואות; מדגם זוגי של כהן ד=0.43].
שיפור משמעותי ברגישות המטא-זיכרון נמצא רק ביום ה-3 של הניסוי. לפיכך, היישום של STAMPs במהלך SWOs בשני הלילות שלאחר צפייה ב-shot one הוביל לשיפור ספציפי של המטא-זיכרון עבור הפרקים שתויגו וגם נרשמו.
שינויי קוהרנטיות גלובליים
כמעבר ראשון, בדקנו שינויים כלליים בקוהרנטיות הממוצעת על פני הקרקפת עקב גירוי STAMP כדי לקבוע אם גירוי הוביל לשינויים מדידים בקישוריות.
בנוסף, ביקשנו לשחזר עבודות קודמות ולהעריך האם גירוי ייצור שינויים דומים בקוהרנטיות כמו למידה במהלך השינה (Mölle et al., 2004). עבודה קודמת (Mölle et al., 2004) דיווחה על אפנון של קוהרנטיות הדלתא, הציר והגמא במהלך השינה לאחר למידה; לעומת זאת, עבודות אחרות (Polanía et al., 2011) הדגימו קישוריות מוגברת בכל פסי התדר בעקבות גירוי tDCS.
לכן, שיערנו שגירוי STAMP יגדיל את הקוהרנטיות הממוצעת בהשוואה למצב ה-Sham ברצועות הדלתא, הציר והגמא, אך בדקנו הבדלים גם בלהקות אחרות עם בדיקות סטטיסטיות שמרניות.
ערכי iCoh ממוצעים בכל פסי התדר חושבו לנתונים מתוקנים בבסיס Active ו-Sham כדי לחקור שינויים בקישוריות גלובלית, ולפיכך נערכו מבחני t חד-זנב על ערכי קוהרנטיות ממוצעים בכל פס תדרים ותוקנו לשימוש בשיעור גילוי שגוי של p< 0.05 (Benjamini & Hochberg, 1995).
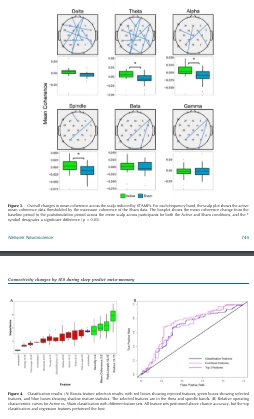
מפות קוהרנטיות המראות קישוריות רבה יותר במצב הפעיל על פני הקרקפת הוצגו על ידי קביעת סף ההדמיה למקסימום של מצב הדמה עבור כל פס תדרים, בעצם הפחתת מצב ה-Sham. שינויי קוהרנטיות ממוצעים שנגרמו על ידי גירוי בפסי תדר שונים מצוינים באיור 3.
עלילות הטופוגרפיה מציגות את הקוהרנטיות בין זוגות של אלקטרודות במצב פעיל, בסף הקוהרנטיות במצב הדמה, בעוד שחלקי הקוהרנטיות המוצגים בסף מתכוונים לערכי קוהרנטיות על פני כל הקרקפת. ניתוח השינויים הכוללים בקוהרנטיות על פני הקרקפת גילה כי STAMPs יצרו עליות משמעותיות בקוהרנטיות הממוצעת ברצועות תדרים מרובים.
קוהרנטיות ה-EEG גדלה באופן משמעותי בעקבות STAMPs ברצועות התטא, האלפא והציר (p < 0.05) בהשוואה למצב הדמה. הקוהרנטיות הממוצעת ברצועות הדלתא, הבטא והגמא לא הייתה שונה משמעותית בין תנאי הגירוי . לפיכך, שינויים הנגרמות על ידי גירוי STAMP בקישוריות המוח בפסי תדר ספציפיים.
סיווג וחיזוי התנהגותי
תוצאות מניתוח הסיווג משורטטות באיור 4 ומתוארות בטבלה 1. ערכי חשיבות ממוצעת על פני קפלים עבור תכונות שנבחרו בבורוטה משורטטות בצד שמאל, כאשר תכונות נחשבות באופן עקבי חשובות מודגשות בירוק (באופן משמעותי מעל ה-Shadowmax הממוצע). על פני קפלים, הרדיוס ברצועת הציר (12-15 הרץ) נבחר באופן עקבי כמאפיין החשוב ביותר.
תכונות חשובות אחרות כללו: אורך נתיב (12-15 הרץ) וממוצע קוהרנטיות וצפיפות (3-8 הרץ). עקומות ROC של ביצועי המסווג משורטטות בצד ימין. כפי שתואר ב-Mason and Graham (2002), בדיקות Mann–Whitney U נערכו על כל מסווג כדי לקבוע אם ביצועי המסווגים היו מובהקים סטטיסטית מעל הסיכוי (AUC=0.5). כל הבדיקות דיווחו על ערכי p מובהקים (p < 0.001).
בנוסף, חישבנו רווחי סמך של 95% תוך שימוש בגישת דגימה מחדש של bootstrap עם 10,000 רפליקציות של bootstrap, שהדגימו עוד יותר ביצועי סיווג מעל הסיכויים (Carpenter & Bithell, 2000).
לפיכך, דיוק הסיווג היה מעל למקרה, ולקיחת המשתנים המובילים מניתוחי סיווג ורגרסיה (אורך נתיב ב-16-30 הרץ ורדיוס ב-12-15 הרץ) הובילו לביצועי הסיווג הטובים ביותר.
כניתוח המשך, ארבעת התכונות שנבחרו על ידי אלגוריתם Boruta לסיווג הוגשו למבחני t, תוך בדיקת ההבדל בקישוריות בין תנאי ה-Active ו-Sham. ערכי ה-p שהתקבלו תוקנו עם שיעור גילוי שגוי שנקבע ל-{{ 2}}.05.
ערכי p המתוקנים עבור אורך נתיב ורדיוס 12-15 הרץ, וקוהרנטיות ממוצעת של 3-8 הרץ היו מובהקים (p=0.029); צפיפות 3-8 הרץ הייתה משמעותית גם ברמת מובהקות אלפא (p=0.05). לפיכך, תכונות קישוריות ששונו משמעותית בעקבות גירוי אקטיבי בהשוואה לגירוי דמה נמצאו על ידי צינור בחירת התכונות. מאפייני אורך הנתיב והרדיוס מקדם לגירוי לאחר גירוי ירדו באופן משמעותי במצב הפעיל בהשוואה ל-Sham, בעוד שמאפייני הקוהרנטיות והצפיפות הממוצעים עלו באופן משמעותי בהשוואה ל-Sham.
עלילות קופסאות המציגות את התכונות הללו עבור שני התנאים מוצגות באיור S3 של המידע התומך. התוצאות מניתוח חיזוי ההתנהגות משורטטות באיור 5 ומתוארות בטבלה 2.
כאן, שינויים במדדים עצביים בעקבות גירוי שימשו כמאפיינים לניבוי שינוי ברגישות המטא-זיכרון של מבחן היזכרות (AUC) הן ל-Tag & Cue והן ל-Shamconditions מיום 2 עד יום 3 כדי לזהות קשרים בין התנהגות מוחית.
ערכי החשיבות של Boruta עבור מאפיינים תיאורטיים של גרפים משורטטים בצד שמאל, אורך הנתיב ברצועת הבטא (16-30 הרץ) נחשב חשוב ביותר לניבוי שינויים ברגישות המטא-זיכרון, והתכונה היחידה שנבחרה. הקשר בין שינוי המושרה על ידי גירוי באורך נתיב של 16-30 הרץ ושינוי בן לילה בביצועי AUC עבור הנתונים הפעילים (Tag & Cue) ותנאי הדמה משורטטים בצד ימין.
המתאם בין השינוי באורך נתיב פס-ביתא לשינוי ב-AUC היה משמעותי עבור המצב הפעיל (r=−0.66, p=0.003), מה שמצביע על כך שאנשים עם אורך נתיב מופחת בעקבות STAMPs נטו להראות שינוי חיובי בביצועי הזיכרון. קשר זה לא היה משמעותי עבור מצב הדמה (r=-0.22, p=0.39).
בהתבסס על התוצאות של ניתוחים אלה, נרשמו רגרסיות ליניאריות עוקבות שחיזו שינוי לילה ברגישות המטה-קוגניטיבית תוך שימוש באורך נתיב בפס 16-30 הרץ הן עבור הנתונים הפעילים והן עבור נתוני הדמה.
עבור הנתונים הפעילים, אורך נתיב 16–30 הרץ ניבא משמעותית את שינוי ה-AUC (t=−3.56, p=0.003, adj. R{{7} }.41). עבור נתוני הדמה, אורך הנתיב 16–30 הרץ לא היה מנבא משמעותי (t=−0.88, p=0.39, adj. R2=−0.01). בוצעו גם ניתוחים נוספים להשוואת התנאים הפעילים והדומים והם מפורטים יותר במידע התומך.

דִיוּן
בניסוי הנוכחי, המשתתפים עסקו במשימת זיכרון אפיזודית תוך שהם מקבלים דפוסים מרחבי-זמניים ייחודיים של גירוי חשמלי טרנסגולגולתי, ותת-קבוצה של הדפוסים יושמו מחדש במהלך מצבי עלייה של SWOs בלילות שלאחר מכן כדי לרמז על הפעלה מחדש של זיכרונות קשורים ספציפיים (ראה Pilly et al., 2020).

כאן, אנו מדווחים על שינויים בקישוריות מוחית תפקודית שנגרמו על ידי דפוסי tES אלה במהלך השינה, שהיו מנבאים שינויים ברגישות המט-זיכרון מקדם לשינה לאחר השינה.
באמצעות טכניקות למידת מכונה כדי לזהות תכונות חשובות לסיווג בין גירוי אקטיבי לגירוי דמה, מצאנו שתכונות הקישוריות ברצועות התטא והציר נבדלו באופן משמעותי בין שני המצבים.
בנוסף, מצאנו ששינויים באורך הנתיב ברצועת הבטא חזו שינויים ברגישות לזיכרון, בכך שעליות ביצועים לאורך הלילה היו קשורות לירידות באורך הנתיב בטא בעקבות גירוי.
ביחד, תוצאות אלו תורמות לגוף הולך וגדל של מחקרים החוקרים את התהליכים העצביים העומדים בבסיס הפעלת זיכרון וגיבוש מחדש במהלך השינה ומציעות כי אפנון של אורך הנתיב בתדרים ספציפיים במהלך תהליך הגיבוש עשוי להוביל לביטחון גבוה יותר וקבלת החלטות טובה יותר עבור זיכרונות חדשים שאוחדו.
ההתפרצויות הקצרות של tES, או STAMPs, בשימוש בניסוי הנוכחי הגדילו את הקוהרנטיות הכוללת של הקרקפת בפסי תדרים נמוכים יותר - כלומר ברצועות התטא, האלפא והציר, או בעצם מ-3-15 הרץ. מעניין לציין ששינויים בקישוריות רצועת הציר במהלך השינה נמצאו גם בעקבות למידה; עם זאת, שינויים בקישוריות לא נמצאו ברצועות הדלתא או הגמא בעקבות גירוי STAMP, דבר שעומד בסתירה מסוימת לעבודות ניסוי קודמות (Mölle et al., 2004).
עם זאת, פרוטוקול הגירוי בו נעשה שימוש שונה במידה רבה ממחקרים קודמים - כלומר, השתמשנו בהתפרצויות קצרות של זרמים חשמליים מפוזרים במרחב-זמני, שנועדו בעיקר לרמז על זיכרונות ספציפיים בשל הייחודיות והקשר שלהם לתקופת הקידוד, לא לווסת או לעורר תנודות ספציפיות. חשוב לציין, פעילות בפסי התדר המדווחים, במיוחד פסי התטא והציר, קשורה לתהליך איחוד הזיכרון (Staresinaet al., 2015).
לפיכך, ייתכן ש-STAMPs מווסתים את התהליכים המתמשכים של הפעלה מחדש או קונסולידציה של הזיכרון במהלך השינה, מה שהוביל לשינויים בקישוריות בפסי התדר שנצפו. עבודה אחרונה הטיל ספק ביעילות של tES בהשפעה משמעותית על התנהגות (Horvath et al., 2015) כמו ביכולתו לווסת דפוסי ירי עצביים או פעילות תנודה (Lafon et al., 2017; Vöröslakos et al., 2018).
עם זאת, מחקרים אחרים הוכיחו שינויים עצביים ניתנים למדידה בבני אדם ובפרימטים לא אנושיים בעקבות tES, אפילו ברמות עצימות נמוכה יותר (Huang et al., 2017; Krause et al., 2017; Opitz et al., 2016). דאגה מיוחדת היא היכולת של tES, במיוחד גירוי זרם חילופין, להכניס תנודות עצביות לתדר מסוים.
כאן, איננו טוענים שהשינויים האלקטרו-פיזיולוגיים המדווחים נובעים מהסחף נדנוד לפרצי הגירוי הקצרים, או שאנו גורמים לשינויים אלה דה נובו, אלא שה-STAMPs פועלים להגברת תהליכי קונסולידציה מתמשכים של זיכרון, המתרחשים באמצעות מודולציות עדינות של הרשת. קישוריות ברמה. אנו טוענים כי דפוסי הקישוריות שנצפו במהלך השינה הם תופעות טבעיות המתרחשות ומובילות לגיבוש זיכרון, וגירוי STAMP פעל על התהליכים הקיימים הללו כדי להגביר את הרגישות המטא-זיכרון.
האפנון המדווח של מדדים תיאורטיים של גרפים ברצועות התטא והציר בעקבות STAMPs עולה בקנה אחד עם מחקרים קודמים המעלים את התנודות הללו בתהליכי הפעלה מחדש וגיבוש זיכרון. הפעלה מחדש של זיכרון ממוקד במהלך השינה עם רמזים שמיעתיים מעוררת עלייה בכוח התטא והציר (Ong et al., 2016; Schreiner et al.,2015; Schreiner & Rasch, 2014).
מחקרים רבים הראו גם את החשיבות של פעילות ה-theta-band עבור קידוד ואחזור זיכרון במהלך ערות (Backus et al., 2016; Lega et al., 2012; Nyhus & Curran, 2010); בפרט, תנודות תטא בהיפוקמפוס הן קריטיות עבור קידוד זיכרון אפיזודי (Hasselmo et al., 2002; Lin et al., 2017). באופן דומה, צירים תלמוקורטיקליים קשורים לזיכרון אפיזודי (Van Der Helm et al., 2011) וממלאים תפקיד חשוב בתהליך איחוד הזיכרון, מה שעשוי להקל על העברה של מידע מקודד חדש באונות הטמפורליות המדיאליות לייצוגים יציבים בקליפת המוח (Sirota) et al., 2003; Staresina et al., 2015).
במהלך השינה, פעילות תטא עשויה להעיד על תהליך ההפעלה מחדש של הזיכרון, בעוד שפעילות הציר עשויה לשקף את הגיבוש הפעיל של הזיכרונות שהופעלו מחדש. כאן, ייתכן ש-STAMPs סימנו הפעלה מחדש של הזיכרונות הקשורים, מה שהוביל לאיחוד מוגבר של מידע זה. איחוד זה הוביל לשיפור הביטחון בזיכרונות במורד הזרם.
המדדים התיאורטיים של גרף ה-theta-band שהותנו באופן משמעותי על ידי STAMPs היו קוהרנטיות וצפיפות ממוצעים. קוהרנטיות ממוצעת מתייחסת לקוהרנטיות הממוצעת על פני כל הקודקודים, בעוד שהצפיפות מחושבת כמספר החיבורים בגרף, מנורמל על ידי המספר הכולל האפשרי של חיבורים (Sporns, 2003).
שינויים במדדים אלו מצביעים על כך ש-STAMPs הגבירו את הקוהרנטיות הכוללת ברצועת התטא בין הערוצים, מה שהוביל למספר רב יותר של קצוות מעל סף הניתוק ובכך לצפיפות חיבור ממוצעת גבוהה יותר. קוהרנטיות וצפיפות רבה יותר זו עשויה לשקף עלייה בחילופי מידע ב-thetaband על פני אזורים עצביים בעקבות STAMPs. זה עולה בקנה אחד עם ממצאים קודמים המרמזים על עלייה בקוהרנטיות התטא בין ההיפוקמפוס לקליפת העצם (Fell et al., 2003), כמו גם לקורטקס הקדמי (Anderson et al., 2009; Benchenane et al., 2010), כמו חשוב עבור למידה וזיכרון, ועלולים להיות קריטיים להפעלה מחדש של זיכרון (Carr et al., 2011).
המדדים התיאורטיים של גרף פס-הציר שהיו שונים באופן משמעותי בעקבות גירוי STAMP היו אורך נתיב ורדיוס. מדדים אלה קשורים-רדיוס מתייחס למינימום האקסצנטריות של הגרף ואורך הנתיב מתייחס לאקסצנטריות הממוצעת של הגרף, כאשר האקסצנטריות של צומת מוגדרת כמרחק המקסימלי לכל צומת אחר (Sporns, 2003).
אורך הנתיב נחשב לעתים קרובות כמדד לאינטגרציה ברשת או ליעילות של העברת מידע, כאשר אורכי נתיב קטנים יותר משקפים יעילות רבה יותר (Bullmore & Sporns, 2009; Reijneveld et al., 2007).
כאן, STAMPs הובילו לירידה ממוצעת באורך הנתיב וברדיוס ברצועת הציר, כלומר האקסצנטריות הממוצעת והמינימלית ירדו, ויעילות העברת המידע גדלה.
זה עשוי לשקף ארגון מחדש של הרשת לכיוון רשת של עולם קטן (Watts & Strogatz, 1998), מבנה כמעט אופטימלי בין מערכת מסודרת בצורה מושלמת ומאורגנת באופן אקראי, המאפשרת גמישות וסנכרון גדול יותר של פעילות עצבית (Barahona & Pecora, 2002 ; Bassett & Bullmore, 2006; Masuda & Aihara, 2004). שינויים ב"עולמות קטנים" נמדדים לעתים קרובות כשינויים באורך הנתיב ללא שינויים נלווים ב-Clustering מקומי, או במקדם אשכול.
לפיכך, השינוי הנצפה באורך הנתיב עשוי להצביע על סנכרון מוגבר בין אזורי מוח, מה שמוביל להעברת מידע יעילה יותר על ידי צירים. שים לב שהשפעות בפס התטא היו קשורות יותר לשינויים הכוללים בקוהרנטיות הממוצעת - שינויים בגודל הקישוריות, בניגוד ליעילות.
בעוד שהנתונים כאן אינם מסוגלים לבסס קשר סיבתי בין השינויים הללו, קשר היפותטי הוא ש-STAMP גרם לקישוריות רבה יותר ברצועת התטא (Fell et al., 2003), ויעילות העברת המידע בציר, שנמדדה כאורך נתיב, הוגברה כדי לפצות עבור עלייה זו, מה שמוביל להפעלה מחדש של הזיכרון.

For more information:1950477648nn@gmail.com