

חלק ראשון תפקידיו של מימן גופרתי בפיזיולוגיה של הכליות ובמצבי מחלות
Jun 13, 2023
תַקצִיר
מימן גופרתי (H2S), משדר איתות גז אנדוגני, זכה להכרה בהשפעותיו הפיזיולוגיות. בסקירה זו, אנו שואפים לסכם ולדון במחקרים קיימים על התפקידים של H2S בתפקודי כליות ומחלות כליות, כמו גם על המנגנונים הבסיסיים. H2S מיוצר בעיקר על ידי ארבעה מסלולים, והכליות הן איברים עיקריים המייצרים H2S. מחקרים קודמים הראו כי H2S יכול להשפיע על מסלולי איתות מרובים באמצעות sulfhydration. בפיזיולוגיה הכלייתית, H2S מעודד הפרשת כליות, מווסת את שחרור רנין ומגביר את ייצור ATP כחיישן לחמצן. H2S מעורב גם בהתפתחות מחלת כליות. H2S היה מעורב באיסכמיה/פרפוזיה של הכליה ומחלת כליות הנגרמת על ידי ציספלטין ואלח דם. במחלות כליה כרוניות, במיוחד נפרופתיה סוכרתית, נפרופתיה יתר לחץ דם ומחלת כליות חסימתית, H2S מחליש את התקדמות המחלה על ידי ויסות מתח חמצוני, דלקת ומערכת רנין-אנגיוטנסין-אלדוסטרון. למרות הצטברות של עדויות ממחקרים ניסיוניים המצביעים על התפקידים הפוטנציאליים של תורמי H2S בטיפול במחלת כליות, תוצאות אלו זקוקות לתרגום קליני נוסף. לכן, הרחבת ההבנה של H2S יכולה לא רק לקדם את המשך ההבנה שלנו בפיזיולוגיה של הכליה אלא גם להניח בסיס להפיכת H2S למטרה למחלות כליה ספציפיות.
מילות מפתח
מימן גופרתי; sulfhydration; פיזיולוגיה של הכליות; פגיעה חריפה בכליות; מחלת כליות כרונית.

לחץ כאן כדי לקבלהיתרונות של Cistanche
מבוא
מימן גופרתי (H2S) הוא גז רעיל וחסר צבע עם ריח של ביצים רקובות. הוא קיים בטבע וניתן למצוא אותו בגז טבעי, בפליטות געשיות ובנפט [1]. בשנת 1989, Warenycia ו-Goodwin [2] הדגימו לראשונה שגוף האדם מכיל H2S, שקיים בעיקר במוח, והצביע על כך שגזע המוח רגיש יותר ל-H אקסוגני2S מאשר חלקים אחרים של המוח. התפקוד הפיזיולוגי של H2S הוכרה רק לאחרונה בהדרגה. ריכוזים גבוהים של H2S עשוי להוביל לעיכוב מוחלט של נשימת התא, דה-פולריזציה של פוטנציאל הממברנה המיטוכונדריאלית ויצירת סופראוקסיד [3]. רמות נמוכות של H2S יכול לווסת מנגנונים הומאוסטטיים כגון בקרת לחץ דם (BP) ואפופטוזיס ולהשתתף במנגנונים פתולוגיים כולל עקה חמצונית (OS) ודלקת [4,5]. בכליות, H2S מעורב באופן פעיל בוויסות הכליות, ו-H2הפרעות בייצור S מעורבות בהופעה ובהתפתחות של מחלות כליה רבות [6]. למרות האקסוגני H2הוכח כי S ממלא תפקידי מפתח בהקלה על מודלים שונים של בעלי חיים של נזק לכליות, המנגנון המולקולרי הספציפי שלו אינו ידוע.
בסקירה זו, אנו מתארים תחילה את H2דור S ופונקציות. לאחר מכן, אנו מציגים את התפקיד של H2S בפיזיולוגיה של הכליות. יתר על כן, אנו דנים ב-H2S כגורם קשור בהתרחשות והתקדמות של מחלת כליות וחושף כמה מנגנונים. לבסוף, אנו מסכמים את היישום של H2תורמים ומעכבי S בעבודה פרה-קלינית ומעריכים באופן הגיוני את הפוטנציאל הטיפולי של H2S במחלות כליות.
Cistanche tubulosa
H2דור S ופונקציות
למרות שבמקור נתפס רק כגז רעיל, H2S מוכרת כעת כמולקולת איתות גזית הדומה במובנים מסוימים לתחמוצת החנקן (NO) ולפחמן חד חמצני (CO) [7]. בניגוד ל-NO ו-CO, H2S הוא חומצי, מה שמאפשר לו להתמוסס במים. בנוסף, כי ח2S הוא ליפופילי ביותר, הוא יכול להתפשט בחופשיות לממברנות התאים של כל סוגי התאים [8]. האנזימים האחראים ליצירת H אנדוגני2S כוללים cystathionine-b-synthase (CBS), cystathionine-c-lyase (CSE), ומיטוכונדריה 3-mercaptopyruvate sulfurtransferase (3-MST) [9]. CBS ו-CSE מייצרים שניהם H2S אנדוגני בציטוזול, בעוד ש-3-MST מייצר H2S אנדוגני במיטוכונדריה [4,10]. H2S אנדוגני מיוצר בארבע דרכים עיקריות. במנגנון הראשון, L-homocysteine ו-serine מייצרים L-cystathionine בפעולת CBS; ה-L-cystathionine משתנה לאחר מכן ל-L-cysteine על ידי CSE. לבסוף, H2S נוצר בתהליך המתווך על ידי CBS ו-CSE בציטופלזמה [6]. במנגנון השני, CSE מגיב עם L-homocysteine כדי לייצר H2S, a-ketobutyrate ו-L-homolanthionine [4]. במנגנון השלישי, cysteine aminotransferase הופך את L-cysteine ל-3-mercapto pyruvate (3-MP), אשר לאחר מכן מנוצל על ידי 3-MST לייצור H2S במיטוכונדריה [11]. במנגנון הסופי, חומצת אמינו אוקסידאז D-מתווך את הטרנספורמציה של D-cysteine ל-3-MP, ו-H2S מיוצר לאחר מכן בפעולת 3-MST. ראוי לציין כי יש לייבא 3–MP למיטוכונדריה לשלב הבא. בכליות, המצע העיקרי לייצור H2S הוא D-cysteine, ו-H2S מ-D-cysteine נמצא בשפע הרבה יותר מזה של L-cysteine [12] (איור 1).
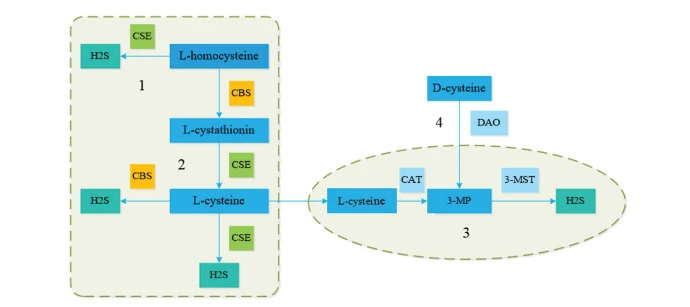
איור 1. סינתזה אנדוגנית של H2S על ידי ארבעה מסלולים. (א) CSE מזרז את התגובה של L-homocysteine כדי לגרום לייצור של H2S. (ב) CBS מגיב עם L-homocysteine, מגביר את יצירת L-cystathionine, אשר הופך לאחר מכן ל-L-cysteine באמצעות CSE, אשר מייצר עוד יותר H2S. (ג) L-cysteine הופך ל-3MP על ידי CAT, ו-3-MST מזרז את התגובה של 3MP כדי לגרום ליצירת H2S במיטוכונדריה. (ד) DAO מגיב עם D-cysteine כדי ליצור 3MP, אשר לאחר מכן נכנס למיטוכונדריה ומשמש כמצע לייצור H2S. CBS (cystathionine b-synthase); CSE (cystathionine c-lyase); CAT (ציסטאין אמינוטרנספראז); 3MP (3-מרקפטו פירובט); DAO (D–חומצת אמינו אוקסידאז); 3-MST (3-mercapto pyruvate sulfurtransferase).
כיצד H2S מבצע פונקציות ביולוגיות? מחקרים אחרונים סיפקו תשובות. H2S יכול לווסת מסלולי איתות שונים המשפיעים על חילוף החומרים של התא. H2S מעורב בהעברת אותות דרך מסלולי איתות באמצעות sulfhydration, שבמהלכו הוא מגיב עם שאריות ציסטאין של חלבוני מטרה שונים ליצירת קשרי פרסולפיד. התגובתיות של sulfhydration נקבעת על ידי קבועי פירוק החומצה של שאריות ציסטאין [13]. מוסטפא וחב'. [14] מצאו כי כ-10-25 אחוז מחלבוני הכבד יכולים להיות מופעלים על ידי S-sulfhydration, כגון אקטין, טובולין וגליצרלדהיד-3-פוספט דהידרוגנאז. S-sulfhydration חיונית לתפקודים של חלבוני כבד; לדוגמה, הוא משפר את פעילות ה-glyceraldehyde-3-phosphate dehydrogenase ואת פילמור האקטין. H2S הוא גורם היפרפולריזציה שמקורו באנדותל שיכול להוביל להיפרפולריזציה ולהרחבת כלי הדם של תאי האנדותל והשריר החלק של כלי הדם. הרחבת כלי דם זו מושגת בעיקר באמצעות הפעלה של תעלות אשלגן רגישות ל-ATP, בינוניות וקטנות מוליכות, והשלב הקריטי ביותר להפעלת התעלה הוא S-סולפירציה [15]. H2S משתתף בתגובות דלקתיות כמולקולת שליח, וההשפעות במורד הזרם של sulfhydration משפיעות על גורם גרעיני jB (NF–jB). NF–jB ממלא תפקיד מפתח בתגובה הדלקתית בתאים. ניל קנתה ואח'. [5] מצא כי גורם נמק גידול-a (TNF-a) יכול לעורר את השעתוק של CSE ליצירת H2S. H2S סולפיריט את Cys38 של p65, משפר את הקישור שלו לחלבון הריבוזום ה-coactivator S3, ובכך מווסת את הפונקציות הגרעיניות של NF–jB. בעכברים חסרי CSE, p65 אינו יכול להתייבש בעצמו, וכתוצאה מכך ירידה בפעילות גן המטרה של NF-jB. החלבון tyrosine phosphatase-1B ממוקם על הפן הציטופלזמי של הרשת האנדופלזמית (ER) והיה מעורב באיתות מתח ER. H2S-Induced sulfhydration של חלבון טירוזין phosphatase-1B משתתף בתגובת הלחץ של ER [16]. P66Shc הוא מפעיל במעלה הזרם של איתות חיזור מיטוכונדריאלי. בתגובה למערכת ההפעלה, p66Shc מופעל באמצעות זרחון בתיווך חלבון קינאז C-bII ב-Ser36. Xie et al. [17] מצא כי H2S מווסת את הזרחון של p66Shc באמצעות הגופרית של שאריות Cys59, ובכך מפחית את ייצור המיטוכונדריה של מיני חמצן תגובתיים (ROS) ומשיג השפעות נוגדות חמצון. גורם גרעיני-אריתרואיד 2-קשור גורם 2 (Nrf2) הוא מווסת ראשי של התגובה נוגדת החמצון. בדרך כלל, Nrf2 נמצא בכל מקום ומתכלה במהירות על ידי הפרוטאזום תחת פעולת חלבון 1 (Keap1) הקשור ל-Kelch דמוי ECH. נתרן גופרתי (NaHS) דווח כ-S-sulfhydryl Keap1 ב-Cys151 ומקדם טרנסלוקציה גרעינית Nrf2 [18].

תוסף Cistanche
ייצור H2S בכליות ותפקידו בפיזיולוגיה של הכליות
1. ייצור H2S בכליות
כמה מחקרים מצאו ששלושת האנזימים המייצרים H2S אנדוגני מתבטאים מאוד ברקמות מסוימות, כמו הכליות [19]. ניתן לזהות CBS, CSE ו-3-MST באבוביות הפרוקסימליות של הכליה. CSE מתבטא בעיקר ב-glomeruli של הכליה, בעורקים אינטרסטיציאליים ובעורקים אינטרלובולריים [19,20]. בתנאים רגילים, החלבון CSE מתבטא ברמה הגבוהה ביותר בכליות, ומגיע לרמות פי 20 מאלו של CBS. ברקמות הכליות של חולדות Sprague-Dawley, כל שלושת האנזימים המייצרים H2S נמצאים, ו-CSE mRNA מתבטא בשפע יותר מאשר 3MST ו-CBS mRNA [4]. לכן, CSE ממלא תפקיד מוביל בייצור H2S [21,22]. CBS ו-CSE מייצרים באופן סינרגטי H2S, ושני האנזימים הללו יכולים להגביר במשותף את הייצור של H2S אנדוגני בכליות [23].
שלושה מסלולי סינתזה מסורתיים של H2S (המערבים CSE, CBS ו-3-MST יחד עם ציסטאין אמינוטרנספראז) זוהו בכליות, כמתואר בסעיף "יצירת H2S ותפקודים". לכן, התמקדנו במסלול דור H2S רביעי, כלומר, מסלול DAO/3-MST [24]. במסלול זה, D-cysteine הופך ל-3-MP על ידי DAO הממוקם ב-peroxisome. עקב חילופי מטבוליטים בין פרוקסיזומים למיטוכונדריה, 3-MP מיובא למיטוכונדריה ומזרז ל-H2S על ידי 3-MST [24] (איור 1). שיבויה וחב'. הראה שליזאט כליות יכול לייצר פי 60 יותר H2S כאשר D-cysteine משמש כמצע מאשר כאשר L-cysteine משמש [12]. הגילוי של מסלול ה-DAO/3-MST הייחודי בכליות ובמוח עשוי לרמוז על תפקיד משמעותי של יצירת H2S בתיווך 3-MST באיברים אלה. אפשרות זו ראויה לבדיקה נוספת.
2. H2S בפיזיולוגיה של הכליות
2.1. השפעת H2S על תפקוד הפרשת הכליות
H2S ממלא תפקיד חשוב בהפרשת הכליה. Xia et al. מצאו שגם CBS וגם CSE יכולים לייצר H2S בכליה ושכאשר כל אחד מהאנזים מעוכב, הביטוי של השני עולה כדי לפצות. הם גם מצאו כי בחולדות ספראג-דאולי מורדמות, עירוי של NaHS בעורק הכליה יכול להגביר את זרימת הדם הכלייתית ואת קצב הסינון הגלומרולרי (GFR). בגלל העלייה בקצב הסינון, החוקרים שיערו שהתפקיד של H2S בכלי דם מרחיבים היה גדול יותר בעורקים פרה-גלומרולריים מאשר בעורקים פוסט-גלומרולריים. H2S יכול גם לעכב את קו-טרנספורטר Na–K–2Cl באיבר העולה של הלולאה של Henle והאנזים Na–K ATPase, מה שעלול להגביר את הפרשת נתרן ואשלגן מהשתן. לכן, H2S משתתף הן בפעולות כלי דם והן בפעולות צינוריות בכליות [23].

כדורי Cistanche
2.2. H2S כחיישן חמצן
H2S עשוי לשמש כחיישן חמצן (O2) להחזרת איזון O2, תופעה שאושרה ברקמות חישת O2 שונות, כגון גוף הצוואר, מדוללת יותרת הכליה ורקמות כימותרספטיביות אחרות, כמו גם בשריר חלק סיסטמי. וכלי נשימה ודרכי נשימה [25]. חילוף החומרים של H2S תלוי מאוד בריכוז O2 [25]. בתנאים פיזיולוגיים, pO2 מופחת במדולה הכלייתית, וחמצון H2S נמצא בקורלציה שלילית ל-pO2 במיטוכונדריה, כך שסביר להניח שהפעילות של H2S במדולה גבוהה מזו בקורטקס הכליה [4]. H2S, המצטבר בכמויות מוגברות במדולה הכלייתית בתנאים היפוקסיים, עשוי לשחזר את אספקת O2 על ידי הגברת זרימת הדם המדולרית [26]. יתרה מכך, מחקרים הראו שבתנאים של מספיק חמצן, הרמות של CBS ו-CSE במיטוכונדריה נמוכות. ברגע שמתרחשת היפוקסיה, הריכוזים של CBS ו-CSE עולים, מה שמגביר את הייצור של H2S [27,28]. H2S שימש כתורם אלקטרונים ומגביר את ייצור ATP [27]. היפוקסיה היא גורם הסיכון החשוב ביותר לפתוגנזה ולהתקדמות של מחלות כליות רבות. מחסור אנדוגני ב-H2S יכול לתרום עוד יותר לפגיעה בחמצן מדולרי ולהחמיר את ההתרחשות וההתפתחות של מחלת כליות [26]. עם זאת, המנגנון הספציפי נותר לא ברור ודורש מחקר נוסף.
2.3. H2S מווסת את שחרור הרנין
H2S מחליש איתות פתולוגי של מערכת רנין-אנגיוטנסין-אלדוסטרון (RAAS) כדי לשמר את תפקוד הכליות. ה-RAAS היא מערכת ויסות הומורלית המורכבת מהורמונים ואנזימים מתאימים המווסתת את הפרשת המים והנתרן. שחרור רנין מתאי יוקסטאגלומרול קובע את הופעתו והתפתחותו של יתר לחץ דם renovascular, הליך המותאם על ידי 30 –50 – מחזורי אדנוזין מונופוספט (cAMP). דווח כי H2S מוריד את ה-cAMP על ידי עיכוב פעילות אדנילט ציקלאז, ובכך מווסת את שחרור רנין ובקרה על BP [29,30]. בתרביות ראשוניות של תאי כליה עשירים ברנין, NaHS מפחית משמעותית את רמות ה-cAMP התוך תאי ומפחית את פעילות הרנין. במודל של חולדה Dahl של יתר לחץ דם גבוה המושרה במלח, נמצא כי טיפול ב-H2S מעכב את הפעלת מערכת RAAS בכליות ומווסת את BP [31]. H2S מווסת גם את BP באמצעות אנזים הממיר אנגיוטנסין, השייך למערכת RAAS. בתאי אנדותל אנושיים, H2S יכול להפריע ישירות לאבץ במרכז הפעיל של האנזים הממיר אנגיוטנסין [32].

Cistanche סטנדרטי
בקצרה, H2S ממלא תפקיד מפתח בפיזיולוגיה הכלייתית; עם זאת, נדרש מחקר נוסף כדי לבסס את המנגנונים הספציפיים המעורבים.
הפניות
[1] רודריגס C, Percival SS. השפעות אימונומודולטוריות של גלוטתיון, נגזרות שום ומימן גופרתי. חומרים מזינים. 2019;11(2):295.
[2] Warenycia MW, Goodwin LR, Benishin CG, et al. הרעלת מימן גופרתי חריפה. הדגמה של ספיגה סלקטיבית של סולפיד על ידי גזע המוח על ידי מדידת רמות סולפיד במוח. Biochem Pharmacol. 1989;38(6):973–981.
[3] Wedmann R, Bertlein S, Macinkovic I, et al. עבודה עם "H2S": עובדות וחפצים לכאורה. תחמוצת חנקן. 2014;41:85–96.
[4] Koning AM, Frenay AR, Leuvenink HG, et al. מימן גופרתי בפיזיולוגיה של הכליה, מחלות והשתלות - הריח של הגנה כלייתית. תחמוצת חנקן. 2015;46:37–49.
[5] Sen N, Paul BD, Gadalla MM, et al. גופרית המקושרת למימן גופרתי של NF-jB מתווך את הפעולות האנטי-אפופטוטיות שלו. מול תא. 2012;45(1):13–24.
[6] Feliers D, Lee HJ, Kasinath BS. מימן גופרתי בפיזיולוגיה של הכליות ובמחלות. אות חיזור נוגד חמצון. 2016;25(13):720–731.
[7] Wen YD, Wang H, Zhu YZ. פיתוחי התרופות של מימן גופרתי על מחלות לב וכלי דם. Oxid Med Cell Longev. 2018;2018:4010395.
[8] Mathai JC, Missner A, K€ ugler P, et al. לא נדרש מנחה להובלת הממברנה של מימן גופרתי. Proc Natl Acad Sci ארה"ב. 2009;106(39): 16633–16638.
[9] Yetik-Anacak G, Sevin G, Ozzayım O, et al. מימן גופרתי: מנגנון חדשני להגנה על כלי דם על ידי רזברטרול תחת לחץ חמצוני באבי העורקים של עכבר. Vascul Pharmacol. 2016;87:76–82.
[10] Ngowi EE, Sarfraz M, Afzal A, et al. תפקידים של תורמי מימן גופרתי במחלות כליה נפוצות. פרונט פרמקול. 2020;11:564281.
[11] Modis K, Coletta C, Erdelyi K, et al. ייצור מימן גופרתי תוך-מיטוכונדריאלי על ידי 3- mercapto pyruvate sulfurtransferase שומר על זרימת אלקטרונים מיטוכונדריאלית ותומך בביו-אנרגטיה תאית. Faseb J. 2013;27(2):601–611.
[12] Shibuya N, Koike S, Tanaka M, et al. מסלול חדשני לייצור מימן גופרתי מ-D-ציסטאין בתאי יונקים. נאט קומון. 2013;4:1366.
[13] פול BD, סניידר SH. איתות H2S באמצעות גופרת חלבון ומעבר לכך. Nat Rev Mol Cell Biol. 2012;13(8):499–507.
[14] Mustafa AK, Gadalla MM, Sen N, et al. H2S מאותת באמצעות חלבון S-סולפירציה. אות מדע. 2009; 2(96):ra72.
[15] Mustafa AK, Sikka G, Gazi SK, et al. מימן גופרתי כגורם היפרפולריזציה שמקורו באנדותל סולידיד את תעלות האשלגן. Circ Res. 2011;109(11): 1259–1268.
[16] Krishnan N, Fu C, Pappin DJ, et al. H2S-Induced sulfhydration של הפוספטאז PTP1B ותפקידו בתגובת לחץ הרשתית האנדופלזמית. אות מדע. 2011;4(203):ra86.
[17] Xie ZZ, Shi MM, Xie L, et al. סולפיידציה של p66Shc ב-cysteine59 מתווך את ההשפעה נוגדת החמצון של מימן גופרתי. אות חיזור נוגד חמצון. 2014;21(18): 2531–2542.
[18] Yang G, Zhao K, Ju Y, et al. מימן גופרתי מגן מפני הזדקנות תאית באמצעות S-sulfhydration של Keap1 והפעלה של Nrf2. אות חיזור נוגד חמצון. 2013;18(15):1906–1919.
[19] Kamoun P. ייצור אנדוגני של מימן גופרתי ביונקים. חומצות אמינו. 2004;26(3):243–254.
[20] Zhang S, Pan C, Zhou F, et al. מימן גופרתי הוא יעד טיפולי פוטנציאלי בפיברוזיס. Oxid Med Cell Longev. 2015;2015:593407.
[21] Kabil O, Vitvitsky V, Xie P, et al. המשמעות הכמותית של אנזימי הטרנססולפורציה לייצור H2S ברקמות עכברים. אות חיזור נוגד חמצון. 2011;15(2):363–372.
[22] Sun HJ, Wu ZY, Cao L, et al. מימן גופרתי: התקדמות ונקודות מבט אחרונות לטיפול בנפרופתיה סוכרתית. מולקולות. 2019;24(15):2857.
[23] Xia M, Chen L, Muh RW, et al. ייצור ופעולות של מימן גופרתי, חומר ביו-אקטיבי גזי חדשני, בכליות. J Pharmacol Exp Ther. 2009;329(3):1056–1062.
[24] Cao X, Bian JS. תפקידו של מימן גופרתי במערכת הכליות. פרונט פרמקול. 2016;7:385. [25] אולסון KR. מימן גופרתי כחיישן חמצן. אות חיזור נוגד חמצון. 2015;22(5):377–397.
[26] Bełtowski J. Hypoxia במדולה הכלייתית: השלכות על איתות מימן גופרתי. J Pharmacol Exp Ther. 2010;334(2):358–363.
[27] Teng H, Wu B, Zhao K, et al. הצטברות מיטוכונדריאלית רגישה לחמצן של cystathionine b-synthase המתווכת על ידי Lon protease. Proc Natl Acad Sci ארה"ב. 2013;110(31):12679–12684.
[28] Fu M, Zhang W, Wu L, et al. חילוף החומרים של מימן גופרתי (H2S) במיטוכונדריה ותפקידו הרגולטורי בייצור אנרגיה. Proc Natl Acad Sci ארה"ב. 2012; 109(8):2943–2948.
[29] Lu M, Liu YH, Goh HS, et al. מימן גופרתי מעכב את פעילות רנין בפלזמה. J Am Soc Nephrol. 2010;21(6): 993–1002.
[30] Liu YH, Lu M, Xie ZZ, et al. מימן גופרתי מונע התפתחות אי ספיקת לב באמצעות עיכוב שחרור רנין מתאי פיטום בחולדות שטופלו באיזופרוטרנול. אות חיזור נוגד חמצון. 2014;20(5):759–769.
[31] Huang P, Chen S, Wang Y, et al. מסלול CBS/H2S בוויסות מטה מעורב ביתר לחץ דם המושרה במלח גבוה בחולדות Dahl. תחמוצת חנקן. 2015;46: 192–203.
[32] Laggner H, Hermann M, Esterbauer H, et al. המימן הגפריתי הגז הגזורי מעכב את פעילות האנזים הממיר אנגיוטנסין של תאי האנדותל. J יתר לחץ דם. 2007;25(10):2100–2104.
Jianan Feng, Xiangxue Lu, Han Li, Shixiang Wang
המחלקה לנפרולוגיה, בית החולים צ'או-יאנג בבייג'ינג, אוניברסיטת קפיטל רפואית, בייג'ינג, סין


