אינטראקציות בין פלבונואידים-מקרומולקולות במחלות אנושיות תוך התמקדות באלצהיימר, טרשת עורקים וסרטן
Feb 22, 2022
גישה למייל:tina.xiang@wecistanche.comלמידע נוסף
תַקצִיר: פלבנואידים, סוג של פוליפנולים, הנצרכים מדי יום בתזונה שלנו, קשורים בסיכון מופחת למחלות כרוניות הקשורות ללחץ חמצוני (OS), כגון מחלות לב וכלי דם, מחלות ניווניות עצביות, סרטן,דַלֶקֶת. המעורבות של פלבנואידים עם מחלות כרוניות הקשורות במערכת ההפעלה יוחסה באופן מסורתי לפעילות נוגדת החמצון שלהם. עם זאת, עדויות ממחקרים עדכניים מצביעות על כך שההשפעה המיטיבה של הפלבנואידים עשויה להיות מיוחסת לאינטראקציה שלהם עם מקרומולקולות תאיות, במקום להפעיל השפעה נוגדת חמצון ישירה. סקירה זו מספקת סקירה כללית של המחקר המתפתח לאחרונה על אינטראקציות בין הפלבנואידים והליפופרוטאין, החלבונים, הכרומטין, ה-DNA, ומולקולות מאותת תאים המעורבות במחלות הכרוניות הקשורות למערכת ההפעלה; הוא מתמקד במנגנונים שבאמצעותם פלבנואידים מחלישים את התפתחות המחלות הכרוניות שהוזכרו לעיל באמצעות ההשפעות הישירות והעקיפות על ביטוי גנים ותפקודים תאיים. הסקירה הנוכחית מסכמת נתונים מהספרות ומהמחקר האחרון שלנו ולאחר מכן משווה את האינטראקציות של פלבנואידים ספציפיים עם המטרות שלהם, תוך התמקדות בפלבנואידיחסי מבנה-פעילות. בנוסף, מוצגות השיטות השונות להערכת אינטראקציות פלבנואיד-חלבון ופלבנואידים-DNA. המטרה שלנו היא לשפוך אור על פעולת הפלבנואידים בגוף, מעבר לפעילותם המבוססת והישירה של נוגד חמצון, ולספק תובנות לגבי המנגנונים שבהם המולקולות הקטנות הללו, הנצרכות מדי יום, משפיעות על תפקוד התא.
מילות מפתח:פלבנואיד; נוגד חמצון; מתח חמצוני; דַלֶקֶת; אלצהיימר; טרשת עורקים; סרטן
1. הקדמה
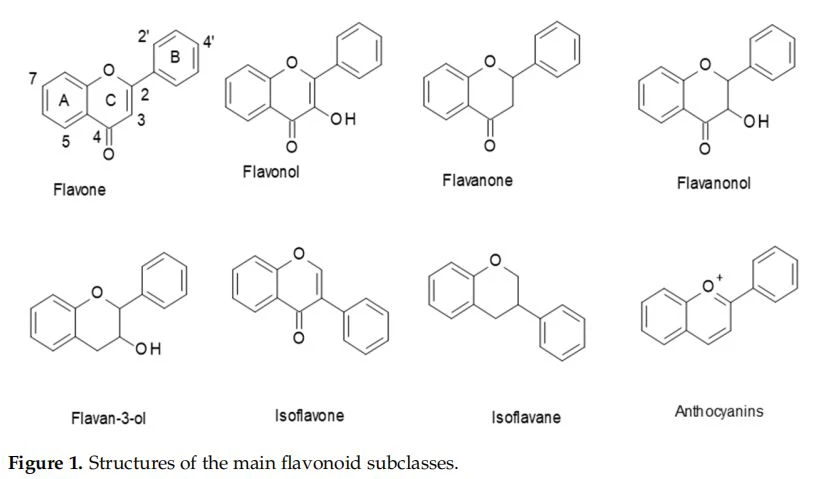
פלבנואידיםהם סוג של פוליפנולים בצמחים הנצרכים באופן נרחב בתזונה שלנו. יש להם עמוד שדרה מבני כללי C6–C3–C6, שבו שתי יחידות C6 (טבעת A וטבעת B) הן בעלות אופי פנולי. ניתן לחלק את הפלבנואידים לתת-קבוצות שונות, כגון פלבנולים, פלבנולים, פלבנונים, פלבנונולים, פלבנול-3- ואנתוציאנינים (איור 1). בעוד שברוב הפלבנואידים, טבעת B מחוברת במיקום C2 של טבעת C, בחלקם, כגון איזופלבונים ואיזופלאבנים, טבעת B מחוברת בעמדה C3 [1].
שֶׁל דִיאֵטָהפלבנואידיםהם מוצרים טבעיים המופצים באופן נרחב בממלכת הצמחים. מזונות ומשקאות רבים, כגון פירות, ירקות, קטניות, דגנים מלאים, שוקולד, תבלינים, תה ויין, הם מקורות עשירים של פלבנואידים [1]. במשך עשרות שנים, חוקרים ויצרני מזון התעניינו יותר ויותר בפלבנואידים, בשל תכונותיהם נוגדות החמצון, השפע הרב שלהם בתזונה שלנו, ותפקידם המוצע במניעת מחלות שונות הקשורות למערכת ההפעלה, כגון סרטן, לב וכלי דם. מחלות נוירודגנרטיביות [2-5]. ספרות עדכנית מספקת עדויות הולכות וגדלות להשפעות הפלבנואידים המתווכות על ידי מנגנונים אחרים מלבד פעילות נוגדת החמצון הקלאסית המונעת על ידי התכונה הכימית שלהם של תרומת אלקטרון או מתכות מעבר קלאטיות [6,7]. חקר דרכי הפעולה הבסיסיות שלהם יכול לספק תובנות חדשות על המנגנונים שבאמצעותם פלבנואידים משפיעים על תפקודים ביולוגיים.
2. פעילויות ביולוגיות של פלבנואיד
2.1. פלבנואידים כנוגדי חמצון
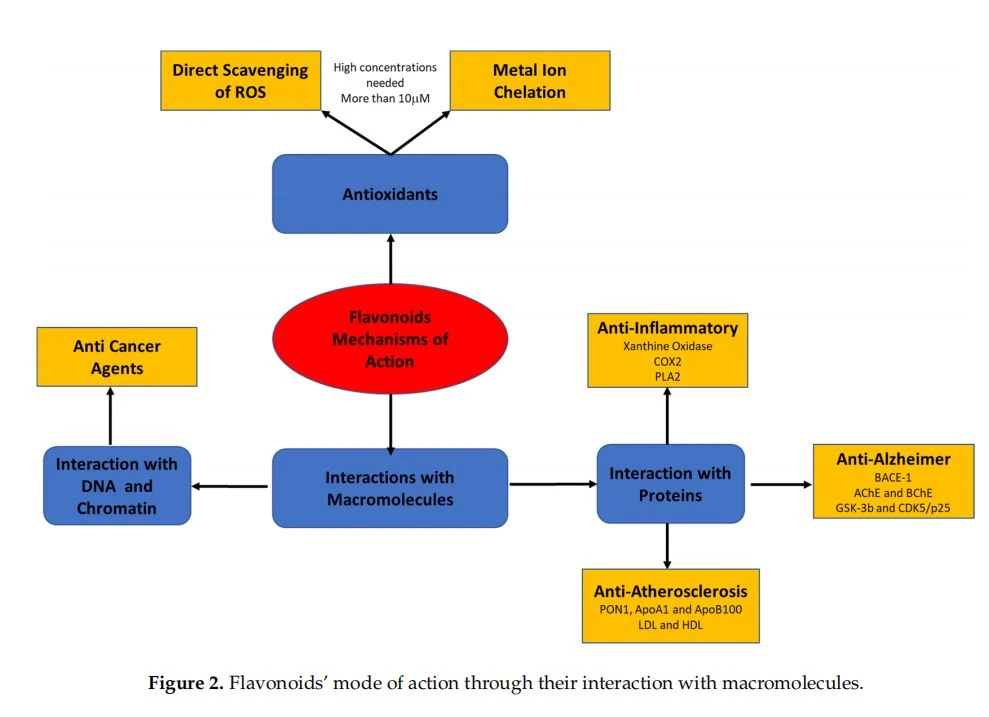
ביחס לפעילות נוגדת החמצון שלהם,פלבנואידיםמאמינים כי הם מונעים מחלות הקשורות למערכת ההפעלה באמצעות ניקוי ישיר של מיני חמצן תגובתיים (ROS) באמצעות תרומה של אטום מימן, הפעלה של אנזימים נוגדי חמצון, פעילות מתכת (כגון ברזל ונחושת) והקלה על החמצון. מתח שנגרם על ידי תחמוצת החנקן (NO) [1,8-11]. עם זאת, פעילות נוגדת חמצון אינה יכולה להיות ההסבר הבלעדי להשפעות הסלולר של הפלבנואידים, שכן פעילות נוגדת החמצון מתבטאת בריכוזי פלבנואידים שהם מעל 10 מיקרומטר, אך ריכוזם במחזור הדם אינו עולה על 2 מיקרומטר [12]. פלבנואידים תזונתיים נספגים בצורה גרועה מהמעי, עוברים חילוף חומרים גבוה או מסולקים במהירות. במהלך הספיגה, פלבנואידים מצומדים במעי הדק ובהמשך בכבד. תהליך זה כולל בעיקר מתילציה, סולפטציה וגלוקורונידציה. זהו תהליך ניקוי רעלים מטבולי המשותף לקסנוביוטיקה רבים המגביל את ההשפעות הרעילות הפוטנציאליות שלהם ומקל על סילוק המרה והשתן על ידי הגברת ההידרופיליות שלהם [13]. מחקרים אחרונים העלו כי ההשפעות הביולוגיות של פלבנואידים עשויות להיות מתווך על ידי מנגנונים שונים שטרם נחקרו במלואם. הסקירה הנוכחית מתמקדת באופן הפעולה של הפלבנואידים באמצעות האינטראקציה שלהם עם מקרומולקולות, כגון ליפופרוטאינים, חלבוני תאים וסרום, ו-DNA ו-RNA (איור 2)

2.2. אינטראקציות פלבנואידים עם מקרומולקולות
2.2.1. אינטראקציות פלבונואיד-חלבון
אינטראקציות מולקולריות של חלבונים וחומצות גרעין עם תרכובות בעלות משקל מולקולרי נמוך הן תחום בעל עניין בסיסי [14]. בריכוזים נמוכים, מולקולות, כגון יונים, מטבוליטים ואוסמוליטים, עלולות להשפיע על חלבונים, כגון אנזימים, קולטנים, נוגדנים וגורמי שעתוק [15]. ההשפעה עשויה להיות ברמה המבנית, התפקודית או הקונפורמטיבית [7]. פלבנואידים תזונתיים הם דוגמה טובה למולקולות קטנות המתווכות השפעות תאיות, שהן מרכזיות במפלי איתות תוך תאיים [16]. ההשפעות של קומפלקסים פלבנואידים-אנזים הנוצרים על ידי אינטראקציה של פלבנואידים עם, למשל, הידרולאזות, אוקסידאזות וקינאזות, על מבנה האנזים ופעילותו נחקרו רבות. מחקרים העלו כי פלבנואידים מקיימים אינטראקציה סלקטיבית עם רכיבים שונים של קינאזות חלבון ומשנים את מצב הזרחון שלהם, ובכך מווסתים מסלולי איתות מרובים של תאים [17]. באופן דומה, פלבנואידים נמצאו כליגנדים לקולטנים גרעיניים, גורמים לשגשוג או הפעלה שלהם ולמודול הומאוסטזיס אנרגטי. Apigenin ו-kaempferol דיכאו ישירות את האינטראקציה בין הקולטן הקשור לאסטרוגן (ERR) וה-Coactivator שלו peroxisome proliferators activated receptor coactivator-1 (PGC-1). לעומת זאת, לוטאולין דיכא את פעילות PGC-1 על ידי קידום הפירוק של PGC-1, מה שהוביל לדיכוי פעילות ERR בתאי HeLa [7,18]. פלבונואידים, כגון גלברידין וגלברן, יכולים גם לקיים אינטראקציה עם הפעילות האנדוגנית של קולטני אסטרוגן בתאי אנדותל ושריר חלק ולווסת, ובכך להאט ואף למנוע מחלות לב וכלי דם והתפתחות סרטן השד והשחלות בנשים לאחר גיל המעבר [19]. בנוסף, נחקרה גם יכולתם של הפלבנואידים ליצור אינטראקציה עם אלבומין בסרום וחלבונים אחרים בסרום [20,21]. האינטראקציות ההפיכות או הבלתי הפיכות בין חלבון לפלבנואידים תלויות ב-pH, בטמפרטורה ובריכוזי חלבון ופלבנואידים [22]. למרות שגורלם הביולוגי של קומפלקסים חלבונים-פלבנואידים in vivo עדיין לא ידוע, נמצא כי פלבנואידים משפיעים על מחלות אנושיות שונות הקשורות למערכת ההפעלה, כגון סרטן, ומחלות לב וכלי דם ונוירודגנרטיביות [23-25].
שיטות לאפיון אינטראקציות פלבונואיד-חלבון
מספר מחקרים בוצעו כדי לאפיין את האינטראקציות בין פלבנואידים תזונתיים וחלבונים, בעיקר סרום וחלבונים הקשורים למזון, למשל, אלבומינים בסרום וקזאין [26-30]. אינטראקציות פלבונואידים-חלבון מתרחשות בעיקר על ידי קשר לא קוולנטי שמקורו באינטראקציות הידרופוביות, ואן דר וואלס, קשירת גשר מימן ואינטראקציות יוניות, שיכולות לשנות קונפורמציות חלבון ופעילויות אנזימים [31]. אינטראקציות לא קוולנטיות בין פלבנואידים וחלבונים חלשות והפיכות. מחקרים סיפקו גם מידע על התגובות הקוולנטיות בין פלבנואידים לחלבונים. פלבנואידים יכולים להתחמצן בקלות ולהגיב קוולנטית עם שרשראות הצד של האמינו והתיול של חלבון על ידי קשירה בלתי הפיכה [32]. שיטות רבות, בעיקר ספקטרוסקופיות, פותחו כדי לאפיין את האינטראקציות הלא קוולנטיות בין פלבנואידים וחלבונים (טבלה 1) [33-36].
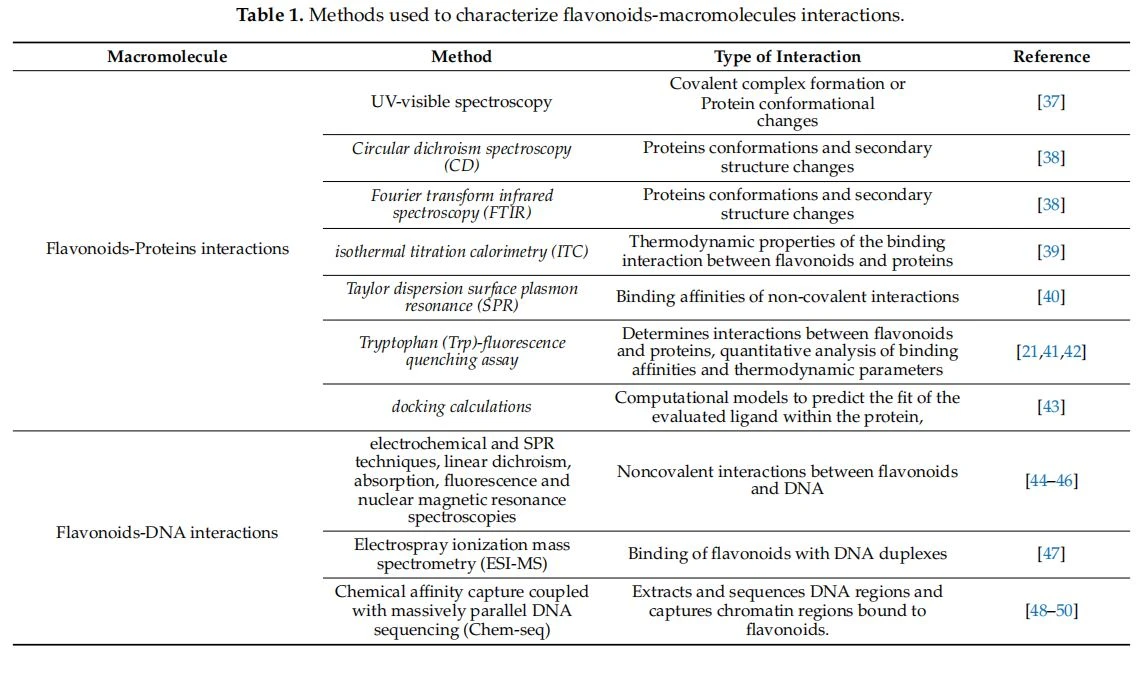
ספקטרוסקופיה גלויה UV משמשת לניבוי אינטראקציות בין פלבונואיד לחלבון ולספק מידע על אופי האינטראקציות הללו. ספיגת חלבון ב-280 ננומטר קשורה לחומצות האמינו הארומטיות טריפטופן, טירוזין ופנילאלנין, אשר עשויות להיות מעוררות עוד יותר עם אינטראקציה עם פלבנואידים [37]. ספקטרוסקופיה של דיכרואיזם מעגלית משמשת לניתוח כמותי של השינויים הקונפורמטיביים, השינויים ב-helix ו-sheet, בחלבונים עקב אינטראקציות לא קוולנטיות עם מולקולות קטנות, כגון פלבנואידים [38]. ספקטרוסקופיה אינפרא אדום של טרנספורמציה פורייה משמשת גם לקביעת השינויים במבנה המשני של חלבונים כתוצאה מאינטראקציות פלבנואידים. שיטה זו מאפשרת לפרש את המבנה המשני מצורת רצועת האמיד I, הממוקמת בסביבות 1650–1660 ס"מ [38]
ניתן ללמוד תכונות תרמודינמיות של אינטראקציית הקישור בין פלבנואידים וחלבונים באמצעות קלורימטריית טיטרציה איזותרמית, שיטה המבוססת על מדידת החום שהתפתח במהלך האסוציאציה המולקולרית [39]. ויטלי וחב'. העריך את אינטראקציות הקישור בין ארבעה פלבנואידים (קאמפרול, לוטאולין, קוורצטין ורזברטרול) ואלבומין בסרום אנושי וגלוטתיון S-transferase Pi isoform 1 באמצעות טיילור תהודה פלסמונית משטחית פיזור (SPR) - טכניקה רגישה מאוד, נטולת תוויות לחקר אינטראקציות לא קוולנטיות של ביומולקולות, במיוחד בין חלבונים, ובין חלבונים למולקולות קטנות [40].
בדיקת כיבוי פלואורסצנטי טריפטופן (Trp) היא שיטה רגישה, סלקטיבית ונפוצה נוספת לקביעת אינטראקציות בין פלבנואידים וחלבונים [21,41,42]. עירור חלבונים ב-280-290 ננומטר משרה פליטת פלואורסצנטי בטווח של 340-350 ננומטר עקב נוכחות Trp. כיבוי הקרינה בטווח זה ניתן לייחס לקשירת פלבנואידים. תוך כדי שימוש בשיטה זו, ניתן לקבוע את מנגנון ההמרה - סטטי (היווצרות מורכבת בין פוליפנול לחלבון) או דינמי (התנגשות של הפלואורופור עם המרווה) באמצעות משוואת שטרן-וולמר וחישוב קבוע שטרן-וולמר וקבוע קצב ההמרה. . עבור כיבוי סטטי, ניתן לחשב את קבוע הקישור ומספר אתרי הקישור במולקולת החלבון, ואז ניתן לאפיין תכונות תרמודינמיות. לבסוף, ניתן להשתמש בחישובי עגינה כדי לחזות את ההתאמה של הליגנד המוערך בתוך החלבון, כאשר הצורה משלימה לאתר הקישור. מודלים חישוביים משלימים את הנתונים הניסיוניים על קישור פלבונואידים-חלבון והוא מאפשר בדיקה בקנה מידה גדול עבור יעדי חלבון שונים שנבחרו מתוך המבנים הזמינים ב-Protein Data Bank (PDB) [43].
2.2.2. אינטראקציות פלבנואידים עם DNA וכרומטין
ישנן עדויות רבות בספרות המדעית לוויסות הגנום על ידי פלבנואידים באמצעות ביטוי גנים ושינויים כרומוזומליים [24,51], אם כי מנגנון הפעולה המדויק נותר לא ברור [48,52]. פלבנואידים, כגון quercetin ו-EGCG, הוכחו לחדור את ממברנות התא ולהצטבר בגרעין של תאי מעיים וכבד אנושיים [53,54]. המבנה של quercetin מאפשר אינטרקלציה מסוג טבע הידרופובי של המקטע ההידרופובי ביותר שלו לתוך החלק הפנימי של סליל ה-DNA [55]. קוורצטין משתלב עם דופלקסים של DNA ו-RNA ונקשר באופן מועדף ל-Triplex ו-tetraplex DNA בתאי סרטן ערמונית אנושיים (DU 145) [53]. למרות שאותו מספר של קבוצות OH, המעורבות בעיקר במנגנון העברת המימן, קיימות בקאמפרול ובלוטאולין, האחרון מפגין זיקה מעט גבוהה יותר ל-DNA. זה עשוי לנבוע מנוכחות של OH במיקום 30 שלו. יחסי מבנה-פעילות באינטראקציות פלבנואידים-DNA אכן זוהו באופן נרחב. מוצע כי הזיקה של פלבנואידים ל-DNA עולה ברצף זהה לזה שמפגין פעילותם הביולוגית [44]. לאחר טיפול ב-DNA עם EGCG או קוורצטין, נרשמו השפעות שונות, כולל נזק ל-DNA, בלימפוציטים היקפיים אנושיים [56,57]. מחקרים מראים ש-EGCG מעכב את הפעילויות של חלבוני כרומטין שונים, כגון חלבון קושר אלמנטים בתגובת cAMP, DNA פולימראז, DNA methyltransferase ו-DNA topoisomerase בריאות אנושית ותאי אדנומה מעי גס ובכבד, ריאות וכליות של עכברים [6,24] ]. תגובות אלו מושפעות ככל הנראה מקשירת EGCG ל-DNA ול-RNA, או לחלבונים המחוברים לחומצות גרעין בסוגים שונים של אינטראקציות. אמנם ידועות האינטראקציות של פלבנואידים, כגון רסברטרול, קוורצטין, EGCG וגניסטין, עם DNA, אך המיקום המדויק של אתרי הקישור לפלבנואידים על ה-DNA, אופן האינטראקציה ותפקודו בגנום אינם מלאים. הבין.
שיטות לאפיוןפלבנואיד- אינטראקציות DNA
קישור קוולנטי של מולקולות קטנות ל-DNA נצפתה לראשונה בתחילת שנות ה-80 [58]. לאחר הקישור הקוולנטי של [14C], נקבעה קוורצטין ל-DNA, נטען שלפלבנואידים יש פעילויות ביוכימיות סותרות (השפעה מוטגנית מחד, והשפעה אנטי קרצינוגנית מאידך) [44]. בנוסף לקישור קוולנטי, פלבנואידים יכולים לקיים אינטראקציה עם DNA על ידי אינטרקלציה, קשירת חריצים וקשירת עמוד שדרה. נעשה שימוש במספר שיטות כדי להבהיר את האינטראקציות הלא-קוולנטיות בין פלבנואידים ל-DNA, כולל טכניקות אלקטרוכימיות ו-SPR, דיכרואיזם ליניארי, ספיגה, פלואורסצנטיות וספקטרוסקופיות של תהודה מגנטית גרעינית [44-46]. הקישור של 10 אגליקונים וגליקוזידים פלבונואידים עם דופלקסים של DNA נחקר תוך שימוש בספקטרומטריית מסה יינון באלקטרוספריי (ESI-MS) [47]. ניתוח ESI-MS ו-SPR הראו ששלוש מולקולות בדיוק של EGCG נקשרות לאוליגומרים חד-גדיליים של DNA poly(dT) 18 mer דרך קבוצת הידרוקסיל אחת של קבוצת הטריהידרוקסיפניל ב-EGCG. לאחר הקישור, ה-EGCG הגן על אוליגומרים דו-גדיליים של DNA מהתכה ל-DNA חד-גדילי [59].
כיום, סימולציה חישובית וספקטרוסקופיה מאומצות בעיקר כדי לחקור מידע ביופיזי (למשל, מצב אינטראקציה) על האינטראקציות בין פלבנואידים ל-DNA [60]. ניסויים שבוצעו בשנים האחרונות העלו אתרי קונצנזוס ספציפיים לקישור DNA עבור פלבנואידים. Quercetin, למשל, נקשר לרצף הדופלקס הדודקאמר CGCGAATTCGCG, שהמבנה הבלתי קשור שלו נפתר לפני שנים רבות (PDB ID: 1BNA) [61]. נכון לעכשיו, ניתן לחשוף את הגנום השלם של אורגניזם באמצעות טכנולוגיות רצף הדור הבא (NGS), כגון Illumina או Sanger מכונות רצף מקבילות מאסיביות. יתרה מכך, בעקבות פרוטוקולים מיוחדים, ניתן לחלץ את ה-DNA באזורים ספציפיים או עם פונקציות ספציפיות ולאחר מכן להשתמש ב-NGS כדי להשיג את רצף ה-DNA. Chem-seq (לכידת זיקה כימית בשילוב עם רצף DNA מקביל בצורה מאסיבית) הוא יישום NGS חדש, אשר שימש לאחרונה לחילוץ ולרצף אזורי DNA שהיו קשורים למולקולות קטנות. שיטה זו מאפשרת לכידת אזורי כרומטין הקשורים למולקולות קטנות ללא מידע קודם, כלומר, עם סמן לא מוטה ולא ספציפי [49]. המחקרים האחרונים כבר המחישו את היכולת לבודד אינטראקציות בין תרופות לכרומטין באמצעות Chem-seq [49,50]. אטרהימוביץ' וחב'. השתמש בטכניקת Chem-seq כדי לאפיין את האינטראקציות בין quercetin ל-DNA תאי והדגים את השפעתו לאחר מכן על שעתוק במורד הזרם [48]. התוצאות מראות שקוורצטין נקשר לכרומטין של מונוציטים ומווסת את הביטוי של גנים המעורבים במחזור התא ובהתפתחות התא [48]. באמצעות יישום Chem-seq, ניתן לקבוע את האינטראקציות של פלבנואידים עם DNA וכרומטין כדי לחקור את משמעותו. יכולת זו עשויה להיות חשובה ביותר לרפואה ולבריאות האדם, ולהועיל לתכנון התערבויות תזונתיות ותרופות מתאימות לטיפול בסרטן.
3. פלבנואידים מחלישים מחלות אנושיות באמצעות אינטראקציות ישירות עם חלבונים, ליפופרוטאינים ו-DNA
3.1. אינטראקציות של פלבנואידים עם חלבוני מפתח המעורבים בדלקת
דַלֶקֶתמאפיין את תגובת ההגנה של מערכת החיסון, הכוללת ייצור של ציטוקינים פרו-דלקתיים וכימוקינים שונים, אשר מגבירים את הייצור של אינטרפרון, פרוטאזות, NO ו-ROS [62]. ציטוקינים גם גורמים לביטוי של cyclooxygenase-2 (COX-2), אנזים המזרז את הייצור של פרוסטגלנדינים (PGs), שהם מתווכים מרכזיים של דלקת [63]. Xanthine oxidase (XO) הוא מקור קריטי נוסף ל-ROS שתורם לדלקת. מצבים דלקתיים מובילים לעלייה ברמות XO, ובכך, ליצירת ROS מוגבר ויצירת פרוקסיניטריט. פרוקסיניטריט הוא מין חנקן תגובתי רב עוצמה (RNS) המלווה ב-OS, אשר נוצר על ידי תגובה של רדיקלים NO וסופראוקסיד [64].
מספר מנגנוני פעולה הוצעו כדי להסביר את הפעילות האנטי-דלקתית של הפלבנואידים in vivo, כגון פעילות נוגדת חמצון ומודולציה של ייצור ציטוקינים פרו-דלקתיים וביטוי גנים [11]. מעניין לציין שהפלבנואידים משפיעים על התהליך הדלקתי לא רק על ידי הפחתת הביטוי של ציטוקינים וסמנים דלקתיים קשורים אחרים, אלא גם על ידי אינטראקציה עם חלבונים הקשורים לדַלֶקֶת. הוכח כי פלבנואידים מווסתים את פעילותם של אנזימים המטבולים חומצה ארכידונית (AA), כגון פוספוליפאז A2 (PLA2), COX וליפוקסיגנאז (LOX), והאנזים המייצר NO תחמוצת החנקן סינתאז (NOS). עיכוב של אנזימים אלה על ידי פלבנואידים מפחית את הייצור של AA, PG, לוקוטריאן ו-NO, שהם מתווכים חיוניים שלדַלֶקֶת. לפיכך, עיכוב פלבנואידים של אנזימים אלה הוא בהחלט אחד המנגנונים התאיים החשובים של אנטי דלקת [65].
קוורצטין היה מעכב הפלבנואידים הראשון שהתגלה של PLA2, מנויטרופילים אנושיים. הוכח כי קוורצטין מעכב באופן סלקטיבי את PLA2 המופרש מקבוצה II [66]. באופן דומה, רוטין עיכב באופן סלקטיבי PLA אנושי 2-II מנוזל סינוביאלי, בעוד שהוא היה מעכב חלש של PLA אנושי 2-I ממיץ הלבלב. כאשר הושוו פלבנואידים שונים עבור יכולתם לעכב PLA2, נראה כי שינויים קטנים במבנה השפיעו הן על עיכוב PLA2 הכולל והן על סלקטיביות של קבוצה II. המיקום של קבוצות ההידרוקסיל נמצא כהיבט חשוב אחד של טבעת C-2, 3-קשר כפול. נראה כי קבוצות ההידרוקסיל במיקומי 3' ו-4' בטבעת B היו חשובות לעיכוב סלקטיבי של PLA2-II, בעוד שקבוצת 5-הידרוקסיל בטבעת A, חוסר הרוויה , ונראה שהאוקסי 4- בטבעת ה-C חשובה ליכולת הכוללת של הפלבנואידים לעכב פעילות PLA2 [67]; העיכוב של PLA2 היה תלוי מאוד במיקום קבוצות הידרוקסיל בטבעות A, B ו-C, בעוד שקבוצות הידרוקסיל בעמדות 5, 6 ו-7 בטבעת A היו נחוצות לקשירה ל-PLA2s. לפיכך, קוורצטין, קאמפרול וגלנגין הראו פעילות מעכבת גבוהה על PLA2, בעוד שנרינגין הפגין פעילות מעכבת נמוכה יותר [68].
COX מייצר PGs וטרומבוקסנים וקיים לפחות בשני איזופורמים שונים, COX-1 ו-COX-2. COX-1 הוא אנזים מכונן הקיים כמעט בכל סוג תאים. בעוד, COX-2 הוא אנזים הניתן להשראה שמתבטא מאוד ב-דַלֶקֶתסוגי תאים הקשורים, כולל מקרופאגים ותאי מאסט [69]. מכיוון שהוא מייצר PGs, COX-2 קשור קשר הדוק לסוגים חריפים כמו גם כרוניים של הפרעות דלקתיות. חלק מהפלבנואידים, כמו לוטאולין, 3',4'-דיהירוקסיפללבון, גלנגין ומורין, קטצ'ין ואפיקטכין, נמצאו כמעכבים את מדלי הכליה COX של חולדה עם IC50 של 100-130 מיקרומטר [70]. בטסיות דם מצטברות תרומבין אנושיים, פללבונואידים מסוימים, כגון כריסין ואפיג'נין, התגלו כמעכבי COX עם IC50 של 13 ו-18 µM, בעוד ש-myricetin ו-quercetin ב-10 µM מפעילים עיכוב חזק של LOX. בפרט, הפחתת ה-C-2, 3-הקשר הכפול והגליקוזילציה הפחיתו את הפעילות המעכבת של הפלבנואידים [71]. אנליזה בסיליקון הוכיחה ש-quercetin יכול לעכב חלקית את האנזים COX-2 על ידי קישור לתת-יחידה A, בעלת פעילות פרוקסידאז ומשמשת כמקור ROS [72].
בדרך כלל,פלבנואידיםעשוי להיות מעורב בעיקר בדַלֶקֶתתהליך באמצעות עיכוב וויסות של אנזימים המווסתים ציטוקינים פרו-דלקתיים או מולקולות קטנות, כגון ROS ו-RNS.
3.2. אינטראקציות של פלבנואידים עם חלבוני מפתח במחלת אלצהיימר (AD)
AD היא מחלה נוירודגנרטיבית נפוצה, המאופיינת בסבכים נוירו-פיברילריים, פלאקים סניליים ואובדן סינפטי, שבסופו של דבר מביא למוות נוירוני [78,79]. AD היא צורה של דמנציה, המאופיינת באובדן זיכרון מתקדם, ירידה בכישורי שפה והפרעות קוגניטיביות אחרות, והיא משפיעה לרוב על קשישים [80]. האטיולוגיה של AD אינה ברורה; עם זאת, מגוון גורמים נחשבים בפתופיזיולוגיה של המחלה, כגון היווצרות של רובדי עמילואיד חלבון (A), רמות נמוכות של אצטילכולין, עקה חמצונית ושינויים לא תקינים לאחר תרגום של חלבון טאו [81,82]. הביקוע הרציף של חלבון מבשר עמילואיד יוצר אגרגטים של פפטידים A של 39-43 חומצות אמינו, הנדבקים לנוירונים כפלאקים עמילואידים בלתי מסיסים. A נוצר מהחלבון המבשר של עמילואיד על ידי -אתר האנזים המפריד חלבון עמילואיד -1 (BACE-1, -secretase) ו-secretases [83,84]. לפיכך, ההנחה היא שהעיכוב של BACE-1 ממלא תפקיד חשוב במניעת AD [85].
לנוירוטרנסמיטר אצטילכולין תפקיד חשוב בתהליך הלמידה והזיכרון בהיפוקמפוס. שני אנזימים, אצטילכולין אסטראז (AChE) ובוטירילכולינאסטראז (BChE) מעורבים בהידרוליזה של אצטילכולין, ומפחיתים את רמתו במהלך התפתחות AD. לכן, העיכוב של AChE ו-BChE הוא אסטרטגיה רצויה ביותר לטיפול ב-AD [86–88]. התרופות המאושרות קלינית טקרין, דונפזיל, גלנטמין וריבסטיגמין שיפרו את הזיכרון לטווח קצר ואת הרמות הקוגניטיביות באמצעות עיכוב של AChE. החסרונות של תרופות אלו ותופעות הלוואי ההדרגתיות שלהן, כגון תופעות לוואי היקפיות, רעילות בכבד והפרעות במערכת העיכול, עודדו חוקרים לפתח מעכבי AChE יעילים יותר [89-91].
פלבנואידים הם מוצרים טבעיים מבטיחים עם פוטנציאל נוירו-פרוטקטיבי, אשר מונעים את הופעתן או מאטים את התקדמותן של מחלות ניווניות הקשורות לגיל. המנגנון שבאמצעותו פלבנואידים מונעים או מאטים את התקדמות AD עשוי להיות באמצעות אינטראקציה ישירה עם אנזימים מרכזיים המעורבים במחלה זו [81,85,92-95]. Shimmyo et al. בדק את הפוטנציאל של פלבונולים ופלאבונים לעכב BACE-1. הם מצאו שארבעה פלבונולים: מיריצין, קוורצטין, קאמפרול ומורין, ופלבון אחד: אפיגנין, מעכבים ישירות את פעילות האנזים BACE-1 באופן תלוי ריכוז, עם ערכי IC50 של 2.8, 5.4, 14.7, 21.7, ו-38.5 מיקרומטר, בהתאמה [95]. מחקרים בעכברים מהונדסים TASTPM מבוגרים (מודל של AD) הראו כי מתן פומי של (-)-epicatechin מפחית פתולוגיה של A באמצעות עיכוב עקיף, לא קטליטי של BACE-1 ולא באמצעות אפנון של פעילות - או - secretase [96 ]. נמצא כי אפיגלוקטצ'ין-3-גלאט (EGCG) וכורכומין מפחיתים את וויסות העל של BACE-1 בתיווך A בתרבויות עצביות, מה שמעניין, הגביר את העיבוד הלא-נמילואידגני של חלבון מבשר העמילואיד על ידי הגברת פיצול -ה-Secretase [95] ]. Pueyo et al. סקר את הספרות על פלבנואידים טבעיים וסינתטיים עם פעילות מעכבת AChE. הם מצאו 128 פללבונואידים כאלה: 41 פלבונים, 21 פלבונים, 35 פללבונולים, 25 איזופלבונים ושישה צ'לקונים. ביניהם, שמונה פלבנואידים סינתטיים עיכבו AChE עם IC50 < 100="" ננומטר.="" שלושה="" פלבנואידים="" טבעיים,="" acaciin="" מפרחי="" חרצית="" indicum,="" ו-desmethylanhydroicaritin="" ו-kaempferol="" משורשי="" sophora="" flavescens,="" עיכבו="" ache,="" עם="" ערכי="" ic50="" של="" 3.2,="" 6.7="" ו-3.3="" ננומטר,="" בהתאמה="" [97].="" אורהן="" וחב'.="" סקר="" נגזרות="" פלבנואידים="" שונות="" על="" עיכובן="" של="" ache="" ו-bche.="" בריכוז="" של="" 1="" מ"ג/מ"ל,="" הקוורצטין="" היה="" היעיל="" ביותר="" כלפי="" ache,="" עם="" עיכוב="" של="" 76.2="" אחוזים,="" וגניסטין="" הראה="" את="" העיכוב="" הגבוה="" ביותר="" (65.7="" אחוז)="" של="" bche,="" ואחריו="" לוטאולין-7-o-rutinoside="" וסיליבינין="" (54.9)="" אחוז="" ו-51.4="" אחוזים,="" בהתאמה)="" [98,99].="" במחקר="" אחר,="" ל-="" citrus="" junos="" הייתה="" השפעה="" מעכבת="" משמעותית="" על="" ache="" in="" vitro="" ו-in="" vivo,="" והתרכובת="" הפעילה="" זוהתה="" כ-naringenin,="" נגזרת="" פלבנון="" עיקרית="" [100].="" לי="" וחב'.="" בדק="" את="" ההשפעה="" המעכבת="" של="" פלבנונים="" הדרים="" על="" bace-1,="" ache="" ו-bche.="" בין="" כל="" הפללבנונים="" שנבדקו,="" הספרידין="" הוכיח="" את="" העיכוב="" הטוב="" ביותר="" של="" bace-1,="" ache="" ו-bche,="" עם="" ערכי="" ic50="" של="" 10.02,="" 22.80="" ו-48.09="" µm,="" בהתאמה.="" מחקרים="" קינטיים="" גילו="" שכל="" הפלבנונים="" היו="" מעכבים="" לא="" תחרותיים="" של="" bace-1="" ושל="" כולינסטראז="">
היפר-פוספורילציה של חלבוני טאו עם הצטברות לאחר מכן כסבכים נוירו פיברילריים תורם עיקרי להפרעות קוגניטיביות ואחד מסמני ה-AD המוקדמים ביותר. ידוע כי מספר קינאזות, כגון GSK-3b ו-CDK5/p25, תורמים לזרחון של חלבוני טאו והם מעורבים בפתוגנזה של AD. ניתן להשתמש בפלבנואידים המעכבים את פעילותם של מספר קינאזות למניעת AD. טיפול עם מורין הפלבנואיד הוכח כמפחית היפר-פוספורילציה של טאו במבחנה ובנוירונים בהיפוקמפוס של חיות טרנסגניות (עכברי 3xTg-AD) [103]. Quercetin עיכב את פעילות PI3-קינאז וציאנידין 3-O-glucoside גם סיפק הגנה משמעותית מפני הפרעות קוגניטיביות הנגרמות על ידי מתן A במודלים של בעלי חיים, המתווכים על ידי אפנון של GSK{{9} }b/tau. [104,105].
בסך הכל, פלבנואידים עשויים להפעיל את הפעולות העצבית הפוטנציאליות שלהם על ידי אינטראקציה עם חלבוני מפתח המעורבים ב-AD. הבנה טובה יותר של אינטראקציות פלבונואיד-חלבון ב- AD יכולה להיות אסטרטגיה מבטיחה לפיתוח טיפולים נוירו-פרוטקטיביים חדשים למניעה וטיפול במחלות ניווניות.
3.3. אינטראקציות של פלבנואידים עם חלבוני מפתח וליפופרוטאינים בטרשת עורקים
טרשת עורקים היא מחלה נוספת שפלבנואידים הוכחו כמחלישות. הצעד הראשון בטרשת עורקים הוא הצטברות של ליפופרוטאין בצפיפות נמוכה (LDL), הנשא העיקרי של הכולסטרול, בדופן העורקים. ליפופרוטאינים בצפיפות גבוהה (HDL), לעומת זאת, הם גורם אנטי-אתרוגני עיקרי בדם, השומר על רמת הכולסטרול בכל הגוף במצב יציב. יותר מ-80 חלבונים זוהו בפרוטאום HDL, כאשר האפוליפופרוטאין A1 ו-A2 מהווים כ-65% ו-15% ממסת החלבון, בהתאמה. שאר החלבונים כוללים מגוון של אנזימים, כגון paraoxonase 1 (PON1). PON1 אחראי לרבות מהתכונות האנטי-אתרוגניות של HDL. מתאמים בין PON1, HDL וטרשת עורקים, הן in vivo והן במבחנה, הוכחו היטב [106,107]. מלבד זרימת כולסטרול, ל-HDL יש פעילויות ביולוגיות חזקות נוספות: נוגד חמצון [108], אנטי דלקתי [109], אנטי אפופטוטי [110] ומרחיב כלי דם [111]. פעילויות אלו אינן תלויות בהכרח בכמות HDL, אך הן כנראה תלויות באיכות שלה [112,113]. בהתייחס לבריאות הלב וכלי הדם, הראינו בעבר שהפלבנואיד גלברידין, המופק משורש ליקריץ, פועל כנוגד חמצון מצוין ומפגין תכונות נוגדות חמצון ואנטי-אתרוגניות. גלברידין נקשר ל-PON1 רקומביננטי (rePON1) ומגן על Cys284 שלו מפני חמצון על ידי הרכיב הטרשתי חומצה לינולאית הידרופרוקסיד (LA-OOH). היכולת הספציפית הזו של גלברידין היא ייחודית; הפלבנואידקטצ'ין אינו מראה כל זיקה מחייבת לrPON1 [21]. הקשר בין מבנה הפלבנואידים והשפעתם על פעילות rePON1 נחקר עוד יותר. האינטראקציות של 12 פלבנואידים מייצגים מתת-מחלקות כימיות שונות עם rePON1 אופיינו [42]. בנוסף, נבדק הפוטנציאל של קומפלקסים rePON1–פלבנואידים למנוע חמצון של LDL, תהליך מפתח באטרוגנזה. קטכין, שאינו נקשר לrPON1, האיץ את חמצון ה-LDL; לעומת זאת, גלברידין הפגין זיקה גבוהה ל-rePON1 והגביר את השפעתו המגנה מפני חמצון LDL [42]. יתר על כן, ראינו באופן עקבי אינטראקציות של פלבנואידים ספציפיים עם חלקיק ה-HDL או החלבונים הקשורים לו, אפוליפופרוטאין A1 ו- PON1. הראינו כי קוורצטין ופוניקלאגין נקשרים לחלקיק ה-HDL ומגבירים את תכונותיו האנטי-דלקתיות [41], ואילו לאחר הקישור לחלקיק ה-LDL או לאפוליפופרוטאין B100 הקשור לו, הפוניקלאגין גרם לזרימת LDL לתאי מקרופאג J774A.1, אשר עשוי להפחית את רמות ה-LDL במחזור הדם [114]. באופן כללי, פללבונואידים, ופוליפנולים באופן כללי, נמצאו כמעכבים סימפטומים של טרשת עורקים ומפחיתים את התפתחותו באמצעות אינטראקציות ספציפיות של פללבונואידים עם חלבוני תאים וסרום וליפופרוטאינים.
3.4. פלבנואידים כסוכנים אנטי סרטניים באמצעות אינטראקציה עם DNA וכרומטין
הפעילות האנטי-סרטנית של הפלבנואידים עשויה להיות תוצאה של האינטראקציה של תרכובות טבעיות אלו עם ביומולקולות (DNA, RNA וחלבון). אנו מכירים בכך שפלבנואידים תזונתיים יכולים לקשור את ה-DNA באופן ספציפי או סטוכסטי ולשנות את תפקודו [115]. מחקרים מקיפים במבחנה מצביעים על כך שפלבונואידים מפחיתים ביעילות את התפשטות התאים, מעוררים אפופטוזיס ומפחיתים את הסיכון לגרורות [24]. ההשפעות המונעות כימותרפיות של פלבנואידים, כולל לוטאולין, אפיגלוקטצ'ין גלאט, קוורצטין, אפיגנין וכריסין, הוצגו תוך התמקדות בהגנה מפני נזקי DNA הנגרמים על ידי גורמים מסרטנים שונים. פלבנואידים אלה מגנים באופן סלקטיבי על תאים נורמליים ומעוררים מנגנוני מוות של תאים בתאי סרטן בריאות אנושית ובתאי אדנומה המעי הגס במהלך כימותרפיה או הקרנות [24]. נמצא כי פלבנואידים, כלומר קוורצטין, מיריצין, קמפפרול, אפיגנין ולוטאולין, שהם מסיסים בשומנים וחומצה חלשה, יכולים להתפזר בחופשיות על פני קרום התא ולהצטבר באופן ספציפי בתוך תאי לוקמיה K562 [116]. לָכֵן,
משתמע שפלבנואידים נוטים יותר לקשור DNA או חלבונים בגרעין התא הסרטני ולקטוע ספציפית את ויסות הגנום הסרטני. בנוסף, תוצאות בסיליקון הראו שקוורצטין, בפרט, יוצר אינטראקציה טובה עם DNA של G-quadruplex, הקשור לטלומראז. קוורצטין פועל כחומר אנטי-סרטני טיפולי באמצעות ויסות פעילות הטלומראז [117]. על ידי השוואת פרופילי קישור חישוביים וניסויים, מחקר חדש אישר כי לקוורצטין יש את הזיקה החזקה ביותר ל-DNA מבין הפלבנואידים שנחקרו. יתר על כן, המחקר גילה כי פלבנואידים יכולים לשנות את הקונפורמציה של ה-DNA ולעכב הגברה של ה-DNA, הם מראים אינדוקציה מרשימה של עצירת מחזור התא, והם עשויים לקדם אפופטוזיס בתאי סרטן HepG2, MCF-7 ו-A549 [60] על מנת להשיג את המינונים הטיפוליים היעילים המשמשים במחקרים פרה-קליניים, יש לתת חשיבות לטכניקות מתן תרופות משופרות וממוקדות, על מנת להגיע ליעילות מירבית עם מינימום תופעות לוואי שליליות. ההתקדמות במערכות אספקת תרופות מבוססות ננוטכנולוגיה פותחות הזדמנויות טובות יותר להגברת המסיסות, שיפור הזמינות הביולוגית ושיפור יכולות המיקוד של פלבנואידים [118]. ננו-חלקיקים המבוססים על ליפוזומים, ליפוזומים של פולי-אתילן גליקול, על בסיס ניקל, על בסיס לציטין וננו-סרט הם נשאים מולקולריים מתאימים לאספקת תרופות פלבנואידיות לרקמות המטרה. דווח כי ננו-חלקיקים שימשו בהצלחה להעברת קוורצטין לגידולים מוצקים במבחנה ובמודלים של סרטן של מערכת העצבים המרכזית, הריאות, המעי הגס, הכבד והשדיים [119].
לפיכך, מחקרים רבים תומכים בפוטנציאל של פלבנואידים כמוצרי בריאות טבעיים במניעת כימותרפיה של סרטן. עם זאת, נדרשים מחקרים נוספים על מנת להגדיר את מנגנון הפעולה שלהם כדי לשפר את ההבנה שלנו לגבי תהליכים אפיגנטיים שעשויים לספק בסיס רציונלי יותר לשילוב תרכובות תזונתיות ספציפיות בסביבה קלינית [24].

דנה אתרחימוביץ' 1,2, דורית אבני 3 וסולימן חטיב 1,2,*
מעבדה 1 לתרכובות טבעיות וכימיה אנליטית, מכון המחקר MIGAL–Galily, קרית שמונה 11016, ישראל; Danaa@migal.org.il
2 המחלקה לביוטכנולוגיה, מכללת תל-חי, גליל עליון 12210, ישראל
3 מעבדת ספינגוליפידים, מטבוליטים ביו-אקטיביים ומודולציה חיסונית, MIGAL-מכון לחקר הגליל, קרית שמונה 11016, ישראל; dorita@migal.org.il* התכתבות: solimankh@migal.org.il; טל.: פלוס 972-4-6953512; פקס: פלוס 972-4-6944980
4. מסקנות
תרומות מחבר:ד"א (דנה אטרהימוביץ'), כתיבה - הכנה ועריכה של טיוטה מקורית, ד"ר (דורית אבני) כתיבת הקטע של 'אינטראקציות פלבנואידים עם חלבוני מפתח המעורבים בדלקת' ועריכה; פיקוח SK, כתיבה-סקירה ועריכה. כל המחברים קראו והסכימו לגרסה שפורסמה של כתב היד.
מימון:מחקר זה לא קיבל מימון חיצוני.
ניגוד עניינים:המחברים אינם מצהירים על ניגוד עניינים.
דנה אתרחימוביץ' 1,2, דורית אבני 3 וסולימן חטיב 1,2,*
הפניות
1. Procházkova, D.; Boušová, I.; Wilhelmová, N. תכונות נוגדות חמצון ופרואוקסידנטים של פללבונואידים. Fitoterapia 2011, 82, 513–523. [CrossRef]
2. Duthie, GG; Duthie, SJ; Kyle, JAM פוליפנולים צמחיים בסרטן ומחלות לב: השלכות כנוגדי חמצון תזונתיים. נוטר. מילון Rev. 2000, 13, 79–106. [CrossRef] [PubMed] 3. Ramos, S. Cancer chemoprevention וכימותרפיה: פוליפנולים תזונתיים ומסלולי איתות. מול. נוטר. Food Res. 2008, 52, 507–526. [CrossRef] [PubMed] 4. Jaeger, BN; Parylak, SL; Gage, FH מנגנונים של פעולת פלבנואידים תזונתיים בתפקוד עצבי ודלקת עצבית. מול. היבטים מד. 2018, 61, 50–62. [CrossRef] [PubMed] 5. Devi, S.; קומאר, ו.; סינג, סק; Dubey, AK; קים, JJ פלבונואידים: מועמדים פוטנציאליים לטיפול בהפרעות נוירודגנרטיביות. Biomedicines 2021, 9, 99. [CrossRef] 6. Williams, RJ; ספנסר, JPE; Rice-Evans, C. Flavonoids: נוגדי חמצון או מולקולות איתות? רדיק חופשי. ביול. Med. 2004, 36, 838–849. [CrossRef] 7. Virgili, F.; Marino, M. ויסות אותות תא ממולקולות תזונתיות: תפקיד ספציפי לפיטוכימיקלים, מעבר לפעילות נוגדת חמצון. רדיק חופשי. ביול. Med. 2008, 45, 1205–1216. [CrossRef] 8. Grotewold, E. The Science of Flavonoids; ספרינגר: קולומבוס, OH, ארה"ב, 2006; ISBN 9780387288215. 9. אגתי, ג.; ברונטי, סי; פיני, א.; גורי, א.; גוידי, ל.; לנדי, מ.; סבסטיאני, פ.; Tattini, M. האם פלבנואידים נוגדי חמצון יעילים בצמחים? עשרים שנה של החקירה שלנו. נוגדי חמצון 2020, 9, 1098. [CrossRef] 10. Liu, Y.; וונג, ו.; גאו, ר.; ליו, י.; Monacelli, F. תובנות חדשות למנגנונים סלולריים ומולקולריים של הזדקנות ומחלות הקשורות להזדקנות: רפואת צמחים כגישה טיפולית פוטנציאלית. חמצן. Med. תָא. Longev. 2019, 2019. [CrossRef] 11. Rolt, A.; Cox, LS בסיס מבני של השפעות אנטי-אייג'ינג של פוליפנולים: הפחתת עקה חמצונית. BMC Chem. 2020, 14, 1–13. [CrossRef] 12. Manach, C.; סקאלברט, א.; Morand, C.; Rémésy, C.; Jiménez, L. Polyphenols: מקורות מזון וזמינות ביולוגית. אמ. ג'יי קלין. נוטר. 2004, 79, 727–747. [CrossRef] 13. Thilakarathna, SH; Vasantha Rupasinghe, HP Flavonoid זמינות ביולוגית, וניסיונות לשיפור הזמינות הביולוגית. תזונה 2013, 5, 3367–3387. [CrossRef] [PubMed] 14. Haq, I. תרמודינמיקה של אינטראקציות בין תרופות ל-DNA. קֶשֶׁת. Biochem. ביופיס. 2002, 403, 1–15. [CrossRef] 15. Uversky, VN חלבונים מופרעים באופן מהותי וסביבתם: השפעות של דנטורנטים חזקים, טמפרטורה, pH, נגדיונים, ממברנות, שותפים מחייבים, אוסמוליטים וצפיפות מקרומולקולרית. חלבון J. 2009, 28, 305-325. [CrossRef] 16. Hou, D.-X.; Kumamoto, T. Flavonoids כמעכבי חלבון קינאז למניעת כימותרפיה של סרטן: קישור ישיר ומודלים מולקולריים. נוגד חמצון. אות חיזור. 2010, 13, 691–719. [CrossRef] 17. Spencer, JPE מעבר לנוגדי חמצון: האינטראקציות התאיות והמולקולריות של פלבנואידים וכיצד אלה עומדים בבסיס הפעולות שלהם על המוח. פרוק. נוטר. Soc. 2010, 69, 244–260. [CrossRef] [PubMed] 18. Huang, Z.; פאנג, פ.; וואנג, ג'; וונג, סי-וו. קשר פעילות מבנית של פלבנואידים עם גמא קולטן הקשור לאסטרוגן. FEBS Lett. 2010, 584, 22–26. [CrossRef] [PubMed] 19. Somjen, D.; קנול, ע.; ויה, ג'; שטרן, נ.; תמיר, S. פעילות דמוית אסטרוגן של מרכיבי שורש ליקוריץ: גלברידין וגלברן, ברקמות כלי הדם במבחנה ובאינבו. J. Steroid Biochem. מול. ביול. 2004, 91, 147–155. [CrossRef] 20. Jin, X.-L.; ווי, X.; Qi, F.-M.; יו, ס.-ש.; ג'ואו, ב.; Bai, S. אפיון של נגזרות חומצה הידרוקסינמית הנקשרות לאלבומין בסרום בקר. Org. ביומול. Chem. 2012, 10, 3424–3431. [CrossRef] 21. אטרהימוביץ', ד.; ויה, ג'; תבורי, ח.; Khatib, S. Glabridin מגן על paraoxonase 1 מעיכוב של חומצה לינולאית הידרופרוקסיד באמצעות אינטראקציה ספציפית: מחקר מרווה פלואורסצנציה. J. Agric. Food Chem. 2012, 60, 3679–3685. [CrossRef] 22. מזל, ג.; ליאו, ה.; מוריי, ניו ג'רזי; גרימר, משאבי אנוש; Warminski, EE; וויליאמסון, חבר פרלמנט; לילי, TH; Haslam, E. Polyphenols, עפיצות וחלבונים עשירים בפרולין. פיטוכימיה 1994, 37, 357–371. [CrossRef] 23. Ciumărnean, L.; Milaciu, MV; Runcan, O.; Vesa, SC; Răchisan, AL; נגריאן, ו.; פרנה, MG; דונקה, ו'; אלכססקו, TG; פארה, א; et al. ההשפעות של פלבנואידים במחלות לב וכלי דם. מולקולות 2020, 25, 4320. [CrossRef] [PubMed] 24. Cijo, V.; דלר, ג.; Rupasinghe, HPV ScienceDirect פלבנואידים צמחיים במניעת כימותרפיה של סרטן: תפקיד ביציבות הגנום. י. נוטר. Biochem. 2017, 45, 1–14. [CrossRef] 25. Maher, P. הפוטנציאל של פלבנואידים לטיפול במחלות נוירודגנרטיביות. Int. י.מול. Sci. 2019, 20, 3056. [CrossRef] [PubMed] 26. Gecibesler, IH; Aydin, M. קשירת חלבון פלזמה של צמחים פלבנואידים לאלבומין בסרום אנושי ופעילותם האנטי-שגשוגית. א. אקד. חזיות. Cienc. 2020, 92, 1–16. [CrossRef] 27. Lin, CZ; הו, מ.; וו, אריזונה; Zhu, CC חקירה על ההבדלים בין ארבעה פלבנואידים בעלי מבנה דומה הנקשרים לאלבומין בסרום אנושי. ג'יי פארם. אנאלי. 2014, 4, 392–398. [CrossRef] 28. Mondal, P.; Bose, A. סקירה ספקטרוסקופית של quercetin והאינטראקציה המורכבת של Cu(II) שלו עם אלבומינים בסרום. BioImpacts 2019, 9, 115–121. [CrossRef] 29. Geng, R.; מא, ל.; ליו, ל.; Xie, Y. השפעת אינטראקציה של אלבומין-פלבנואיד בסרום בקר על הפעילות נוגדת החמצון של פלבנואידים תזונתיים: עדויות חדשות מכימות אלקטרוכימי. מולקולות 2019, 24, 70. [CrossRef] [PubMed] 30. Ma, CM; Zhao, XH מתאר את האינטראקציה הלא קוולנטית של חלבוני מי גבינה עם גלנגין או גניסטאין באמצעות טכניקות רב ספקטרוסקופיות ועגינה מולקולרית. Foods 2019, 8, 360. [CrossRef] 31. Tang, F.; שי, י.; קאו, ה.; יאנג, ה.; חן, X.; Xiao, J. סרום בקר עוברי משפיע על היציבות והפעילות הביולוגית של אנלוגים של רזברטרול: גישת אינטראקציה בין פוליפנול לחלבון. Food Chem. 2017, 219, 321–328. [CrossRef]