

האם תמצית Cistanche Deserticola יכולה לקדם תגובה חיסונית?
Mar 22, 2022
איש קשר:joanna.jia@wecistanche.com/ WhatsApp: 008618081934791
Shuangshuang Feng a,1, Xiumei Yang a, Xiang Weng a,1, Bin Wang b, Ailian Zhang a,*
מעבדת מפתח של שינג'יאנג למשאבים ביולוגיים והנדסה גנטית, המכללה למדעי החיים והטכנולוגיה, אוניברסיטת שינג'יאנג, אורומצ'י, 830046, שינג'יאנג, סין
מעבדת מפתח לווירולוגיה מולקולרית רפואית, בית הספר למדעי הרפואה הבסיסית, המכללה הרפואית של שנחאי, אוניברסיטת פודן, שנחאי, 200032, סין
רלוונטיות אתנו-פרמקולוגית:פוליסכרידים צמחיים הציגו פוטנציאל גדול לשיפור מערכת החיסון. אדג'ובנטים הם כלי מפתח לפיתוח חיסונים יעילים. במחקר הקודם שלנו, פוליסכריד מסיס במים המופק מטבעCistancheמדבריתYC Ma הראה פעילות אימונוסטימולטורית חזקה.
מטרת המחקר:במחקר זה, הפרופילים החיסוניים והיעילות של תמציות מימיות של מתורבתCistancheמדבריתנחקרו YC Ma (AECCD) על עכברי ICR נגד אולבומין (OVA). בניסויים במבחנה, מנגנון הפעלת DC אפשרי על ידי AECCD הוערך.
חומרים ושיטות:AECCD חולצו באמצעות מים חמים ולאחר מכן הושלכו הפוליסכרידים הגולמיים על ידי אתנול. עכברים חוסנו תחילה תת עורית עם OVA (10 אג"ג לכל עכבר) בלבד או OVA (10 אג"ג לכל עכבר) בהתאמה המכילה מינונים שונים של AECCD (200, 400 ו-800 אג"ג לכל עכבר) בימים 1 ו-14 ואת הגודל והקינטיקה של לאחר מכן הוערכו נוגדנים ותגובות בתיווך תאים.
תוצאות:AECCD עוררה תגובות IgG נמרצות וארוכות טווח עם תגובות Th1/Th2 מעורבות ורמות מווסתות של ציטוקינים הקשורים ל-Th (CD4 פלוס IL-4, CD4 פלוס IFN- ו-CD8 פלוס IFN-). יתר על כן, AECCD גרמה לתא החזקחֲסִיןתְגוּבָהמאופיין בשגשוג מוגבר של splenocyte וכן בתגובת תאי T משופעלים. יש לציין כי AECCD שיפר באופן משמעותי את ההבשלה של תאים דנדריטים (DCs) ועיכבה Tregs. ניסויים במבחנה, בדיקות ראשוניות הצביעו על כך ש- AECCD גרמה להפעלת DC על ידי קידום הבשלה פנוטיפית, קטע ציטוקינים ופעילות אלוסטימולטורית. קולטן דמוי אגרה 4 (TLR4) היה קולטן חיוני ל-DCs לקשור ישירות ל-AECCD. המעכבים של NF-κB הפחיתו את רמות הביטוי של CD40, CD80, CD86 ו-MHC-II ואת הייצור של IFN-, TNF- ו-IL-6 דרך DCS.
מסקנות:לבסוף, ממצאים אלה הצביעו על כך ש- AECCD יכול לעורר אנטיגן עוצמתי ועמידחֲסִיןתגובותבאמצעות הפעלת DC, שהייתה מעורבת בוויסות סמני הבשלה וביטוי ציטוקינים דרך מסלול NF-κB הקשור ל-TLR4-. המחקר מצביע על כך ש- AECCD הוא אימונומודולטור פוטנציאלי.
מילות מפתח:תוסף פוליסכריד תרבותי,Cistancheמדברית, אימונומודולטור, תאים דנדריטים קולטן דמוי אגרה 4, מסלול איתות NF-κB
Cistanche מדבריתלחלץ לקדםחֲסִיןתְגוּבָה
1. הקדמה
מחקרים רבים העלו כי אדג'ובנטים יכולים לשפר את היעילות של חיסונים נגד מחלות זיהומיות שונות כגון HIV, COVID-19, שפעת ומחלת הפה והטלפיים (Cao et al., 2020; Giuseppe et al., 2018 ). תוספים יכולים לגרום לסוגים וגדלים שונים שלחֲסִיןתגובות, כך שאדג'ובנט שנבחר כראוי עשוי לגרום לחֲסִיןתְגוּבָהנדרש לפתוגן או אנטיגן נתון (Reed et al., 2013). תמציות עשבוניות טבעיות נמצאות בשימוש נרחב בחיי היומיום או בבריאות. במקרים רבים, הרפואה הסינית המסורתית (TCM) ומרכיביה הפעילים, במיוחד מספר רב של אדג'ובנטים שמקורם בפוליסכרידים של TCM, שיפרו משמעותית את יעילות החיסונים. לפוליסכרידים TCM (Advax™, Astragalus polysaccharide, Ginseng polysaccharide, Lycium barbarum polysaccharide ו- Ganoderma lucidum polysaccharide) היו כמה יתרונות על פני אדג'ובנטים אחרים, כגון בטיחות טובה יותר, תאימות ביולוגית, שיפור חיסוני חזק ותגובתיות נמוכה, Schijn ו-Schijn; et al., 2020). תרכובות ותכשירים המבוססים על פוליסכרידים TCM, לפיכך, הם בעלי פוטנציאל כמועמדים אדג'ובנטיים.
Cistanche מדבריתYC Ma (Roucongrong בסינית) היא רפואה סינית מסורתית המתועדת בפרמקופיה הסינית ומשמשת כמזון טוניק במשך מאות שנים בסין (ועדת הפרמקופיה הסינית, 1992). מחקרים פרמקולוגיים מודרניים הראו את היישומים הפרמקולוגיים והאימונומודולטורים המרובים שלו (Dong et al., 2007; Fu et al., 2017). במחקר הקודם שלנו, הפוליסכרידים הגולמיים שמקורם בטבעCistancheמדבריתYC Ma קידם את התגובות ההומורליות והתאיות הספציפיות לאנטיגן והסדיר את ההבשלה של תאים דנדריטים (DCs) (Zhang et al., 2018; Zhao et al., 2019). עם זאת, פראיCistancheמדבריתYC Ma נחקר בצורה מוגזמת ונרשם כמינים בסכנת הכחדה.CistancheמדבריתYC Ma נשתלה בקנה מידה גדול ונמצאת בשימוש נרחב בפיתוח ויישום משאבי TCM. עם זאת, פוטנציאל האדג'ובנט של מעובדCistancheמדבריתYC Ma עדיין לא ברור.
DCS הם מווסתים חיוניים נגד מחלות זיהומיות. לאחר הפעלת DCs, מולקולות פני השטח וציטוקינים פרו-דלקתיים על DCs מקיימים אינטראקציה עם קולטנים מתאימים כדי להפעיל תאי T ולעורר תגובות ספציפיות לאנטיגן וייצור ציטוקינים המכוונים אדפטיבייםחֲסִיןתגובות(בנצ'רו ושטיינמן, 1998). דווח כי קולטן דמוי אגרה 4 (TLR4) על DCs מתפקד כקולטן רב סוכרים חשוב (Park et al., 2014; Qi et al., 2016). ואכן, פוליסכרידים רבים יכולים לקיים אינטראקציה ישירה או עקיפה עם TLR4 על DCs כדי להפעיל את הגורם הגרעיני-kappa B במורד הזרם (NF-κB), אשר יכול לגרום לביטוי של גנים פרו-דלקתיים שונים כגון IFN-, TNF- ו-IL{{11 }} והתגובה הדלקתית לחיסול פתוגנים (Tian et al., 2019; Zhou et al., 2017; Zhu et al., 2013). לכן, DCS ו-NF-κB נחקרו בהרחבה כיעדים פוטנציאליים לטיפול במחלה.
במחקר, עם אסטרטגיית in vivo (עכברי ICR), הערכנו לראשונה את ההשפעות האימונוסטימולטוריות של תמציות מימיות של תרבות.CistancheמדבריתYC Ma (AECCD) עם מינונים שונים (נמוכים, בינוניים וגבוהים) כדי לעוררחֲסִיןתְגוּבָהנגד OVA ולהסביר את הדרך במבחנה להפעלת DCs ומסלולים הקשורים לקולטנים במורד הזרם. עם מודל עכבר, גילינו ש- AECCD קידם את תגובת הנוגדנים ארוכת הטווח עם טיטר IgG מוגבר ותאיחֲסִיןתְגוּבָה. חשוב לציין, AECCD גרמה לציטוקינים הקשורים ל-Th, במיוחד ייצור IFN, מה שהוביל לתגובת Th1 נגד זיהומים. השפעת האינדוקציה הייתה בקורלציה הדוקה עם התבגרות DC משופרת וירידה ב-Tregs. מבחינה מכאנית, AECCD קידמה הפעלת DC באמצעות מסלול NF-κB הקשור ל-TLR4-. לסיכום, המחקר אישר את הפעילות האדג'ובנטית החזקה של AECCD בקידום התגובה ההסתגלותית. המחקר הניח בסיס לפיתוח תוספי פוליסכריד AECCD.
2. חומרים ושיטות
2.1. ריאגנטים
Ovalbumin (OVA), 3-(4, 5-dimethylthiazol-2-yl)-2, 5-diphenyltetrazolium bromide (MTT), polymyxin B (PMB), concanavalin A (ConA), ליפופוליסכריד (LPS), מיטומיצין C ו-3,3′,5,5′-Tetramethylbenzidine (TMB) התקבלו מסיגמא (ארה"ב). סרום בקר עוברי (FBS) נרכש מתעשיות ביולוגיות. ערכת ספירת תאים-8 (CCK-8) נרכשה מ-Biosharp (סין). צימודים של IgG/IgG1/IgG2a-HRP נגד עכברים של עיזים היו מבית Southern Biotech (ארה"ב). Inject Alum היה מ-Thermo Scientific Pierce (ארה"ב). GM-CSF היה מפפרוטק (ארה"ב). נוגדנים עם תיוג פלואורסצנטי (אנטי-CD3-PE, אנטי-CD4-APC, אנטי-CD8a-FITC, אנטי-CD44-PE, אנטי-CD62L-PE, אנטי-MHCII -FITC/Percp-cy5.5, anti-IL-4-PE, anti-IFN– -PE, anti-CD86-APC, anti-CD40-FITC/PE, anti- CD11c-PE/FITC, anti-CD80-APC), Golgistop, Cytofix/Cytoperm ומאגר Perm/Wash היו כולם מ-BD Bioscience (ארה"ב). ערכת הצביעה הרגולטורית של תאי T הייתה מבית eBiosciences (ארה"ב). TAK-242 היה מ-MedchemExpress (שנחאי, סין). PDTC היה מ-Beyotime Biotechnology (סין). ערכת מבחני הזרימה הרב-אנליטית הייתה מבית Biolegend (ארה"ב).
2.2. הכנת AECCD C. deserticola
(דגימת שובר מס' CD10041602) זוהתה על ידי פרופסור Jiang He. AECCD הושג על ידי מיצוי מים, משקעים אתנול ושיטת דה-פרוטאין עם כמה שינויים קלים (Zhang et al., 2018). בקצרה, מעובדCistancheמדבריתתחילה חולץ עם מים פעמים רבות ולאחר מכן פוליסכרידים גולמיים הושקעו בן לילה על ידי הוספת אתנול לפי יחס נפח של 1:4. לאחר מכן הפוליסכרידים הגולמיים שהתקבלו הופרו חלבון בשיטת Sevag (Liu et al., 2012). התכולה הכוללת של סוכר זוהתה כ-76.82 אחוזים בשיטת אנטרון-חומצה גופרתית (Dubois et al., 1951).
2.3. ניתוח ספקטרוסקופי אינפרא אדום
לצורך ניתוח קבוצות פונקציונליות אורגניות, AECCD עם KBr נלחץ לתוך כדורים למדידת ספקטרום אינפרא אדום (IR). ספקטרום ה-IR של דגימות נקבע בתוך 4000-400 ס"מ-1.
Cistancheהרבהלקדםחֲסִיןתְגוּבָה
2.4. ניסויים in vivo
2.4.1. חיסון בעלי חיים
נקבות עכברי C57BL/6 ועכברי ICR (בני 6 שבועות) מהאוניברסיטה הרפואית של Xinjiang (Urumqi, סין) התאקלמו למשך 3 ימים. כל הליכי הניסוי נערכו בהתאם לתקנות הוועדה לאתיקה של ניסויים בבעלי חיים של מעבדת מפתח של שינג'יאנג למשאבים ביולוגיים והנדסה גנטית באוניברסיטת שינג'יאנג (BRGE-AE001).
עכברים חוסנו תת עורית עם OVA לבד או OVA עם ריכוזים שונים של AECCD וחולקו ביום 14 לפי קבוצות שונות כדלקמן (6 עכברים בכל קבוצה): קבוצת ביקורת (0.9 אחוז NaCl), קבוצת OVA ( 10 ug OVA), קבוצת AECCD-H (AECCD 800 ug), קבוצת OVA/AECCD-L (10 ug OVA, AECCD 200 ug), קבוצת OVA/AECCD-M (10 ug OVA, AECCD 400 ug ), קבוצת OVA/AECCD-H (10 ug OVA, AECCD 800 ug), וקבוצת OVA/Alum (10 ug OVA, Alum100 ug). ניסוחי חיסון ב-100 μL של 0.9% NaCl הוזרקו בשני אתרים שונים (50 μL בכל אתר) בעור האחורי של כל עכבר. לאחר החיסון, דגימות דם נאספו ממקלעת הרטרו-אורביטלית, וסרום נרכש ונשמר ב-80 ◦C לניתוח נוסף של גילוי IgG. שגשוג ספלנוציטים וזיהוי של ציטוקינים, תת-קבוצות של תאי T, סמני משטח DCs וטרגס בוצעו לאחר אותו פרוטוקול חיסון.
2.4.2. ניתוח נוגדנים
טיטר IgG בסרום נגד OVA נקבעו על ידי ELISA בימים 14, 28, 42 ו-56 לאחר חיסון ראשוני שהוזכר קודם לכן (Zhang et al., 2018). IgG1 ו-IgG2a נמדדו ביום 21. הספיגה ב-450 ננומטר/630 ננומטר התקבלה באמצעות קורא (Bio-Rad, ארה"ב). התוצאות של תגובת נוגדנים מבוטאות כטיטרים של IgG ואיזוטיפים של IgG1 ו-IgG2a באים לידי ביטוי כספיגות תואמות.
2.4.3. בדיקת התפשטות ספלנוציטים
בדיקת התפשטות ספלנוציטים בעכברים בוצעה עם ערכת בדיקת CCK-8 לפי הוראות היצרן. ביום 21 לאחר החיסון הראשון, הספלנוציטים בודדו מהטחול של עכברים מחוסנים והאריתרוציטים חולקו לאחר טחינה. ספלנוציטים (1 × 10⁶ תאים/באר) עוררו עם OVA (10 ug/mL), OVA323-339 (10 ug/mL), ConA (10 ug/mL) ו-LPS (10 ug/mL) עבור יומיים ותאים ריקים שימשו כבקרה. פעילות ההתפשטות התבטאה כאינדקס גירוי (SI), שחושב את יחס הספיגה של תא מגורה לתא לא מגורה באורך גל של 570/630 ננומטר.
2.4.4. ניתוח של פנוטייפ T-לימפוציטים בבלוטות לימפה וטחול מתנקזים
תרחיפים של ספלנוציטים מבלוטות לימפה וטחול בעכברים מחוסנים הושגו לפי השיטה שהוזכרה לעיל (Zhang et al., 2018). לאחר הכביסה, דגימות (1 × 10⁶ תאים/באר) נצבעו במשך 30 דקות בנוגדנים עבור סמני משטח, כולל אנטי-CD3-PE, אנטי-CD4-APC, אנטי-CD8a-FITC, anti-CD44-PE, ו-anti-CD62L-PE. רמות הלימפוציטים מסוג T נבדקו על ידי ציטומטריית זרימה. התוצאות של פנוטיפים של לימפוציטים מסוג T מבוטאות כאחוזים של תאי CD4 פלוס T (אחוז), תאי CD8 פלוס T (אחוז), CD44 פלוס תאי T (אחוזים) ו-CD62L פלוס (אחוז) תאי T.
2.4.5. ניתוח זרימה ציטומטרי של רמות ציטוקינים
לצורך ניתוח צביעת ציטוקינים תוך-תאיים, לימפוציטים בטחול הופרדו ועובדו להשעיה חד-תאית ביום 21 לאחר החיסון הראשון (Zhang et al., 2017). דגימות (2 × 10⁶ תאים/מ"ל) מגורה עם OVA (10 ug/mL) הודגרו במשך 4 שעות. Golgistop נוסף לאחר מכן למשך 12 שעות. לאחר מכן נשטפו הדגימות, נחסמו והוצבעו בנוגדנים נגד CD4- APC או anti-CD8a-FITC למשך 30 דקות. לאחר הקיבוע והפרמיביליזציה עם Cyto fix/Cytoperm, הדגימות סומנו בנוגדנים אנטי-IL-4-PE או anti-IFN- -PE. בוצע ניתוח זרימה כדי לקבוע את רמת הציטוקינים.
2.4.6. הערכה של הפעלת DC ותאי Treg בטחול
כדי לחקור האם DCs ו-Tregs ממלאים תפקיד בשיפורחֲסִיןתְגוּבָהנגד OVA, ביום 3 לאחר החיסון הראשון, נקצרו לימפוציטים בטחול מעכברים מחוסנים לצורך הערכת התבגרות DC (Zhang et al., 2017). תאים נחסמו והודגרו בהתאמה עם אנטי-CD11c-PE/FITC, אנטי-CD40-PE, אנטי-CD86-APC, אנטי-CD80-APC ואנטי-MHCII- FITC למשך 30 דקות. תאים נותחו על ידי ציטומטריית זרימה. ביום 21 לאחר החיסון הראשון, Tregs נבדקו עם ערכת הצביעת תאי T הרגולטורית של עכבר. ספלנוציטים נצבעו באנטי-CD4-FITC עבור סמני פני תאים, ואחריו צביעה תוך-תאית עם אנטי-CD25-APC ו-anti-Foxp3-PE בהתאם להוראות היצרן. הרמה של תאי CD4 פלוס CD25 פלוס Foxp3 פלוס נקבעה על ידי ציטומטריית זרימה.
Cistanche צמח תמצית מקדמת אחֲסִיןתְגוּבָה
2.5. ניסויים במבחנה
2.5.1. יצירת DCs, כדאיות תאים ורמות אנדוטוקסין
DCs שנגזרו ממח העצם של עכברי C57BL/6 הושגו לפי השיטה שתוארה קודם לכן (Inaba et al., 1992). בקצרה, תאים תורבו עם מדיום RPMI-1640 שלם (20 ננוגרם/מ"ל GM-CSF ו-5 ננוגרם/מ"ל IL-4). לאחר שישה ימים, כל התאים המרחפים נאספו כ-DCs לא בשלים למבחנים הבאים. אחוז CD11c פלוס DCs בתאים הלא נצמדים נקבע כ-94 אחוזים על ידי ציטומטריית זרימה.
כדאיות התא של DCs ושל splenocytes מעכברים על AECCD זוהתה עם ערכת CCK{{0}} בהתאם להוראות היצרן. התאים מ-DCS ומ-splenocytes התקבלו ולאחר מכן עוררו עם ריכוזים שונים של AECCD (0, 10, 100, 400, 800 ו-1600 ug/mL). כדאיות התא התבטאה כיחס בין הספיגה של הקבוצה המטופלת לספיגה של קבוצת הביקורת) × 100 אחוז.
לצורך אי הכללה של ההשפעה של אנדוטוקסין ב-AECCD, לאחר AECCD (100, 200 ו-400 ug/mL) ו-LPS (100 ng/mL) טופלו מראש ב-PMB (100 ug/mL) במשך 60 דקות, DCs (5 × 10⁵ תאים/מ"ל) הודגרו עם AECCD שטופלו מראש (100, 200 ו-400 ug/mL) ו-LPS למשך 12 שעות. לאחר הטיפול הנ"ל, הרמות של CD40, CD86, CD80 ו-MHCII הוערכו.
2.5.2. ניתוח של פנוטיפ DC
רמות המולקולות הקוסטימולטוריות נקבעו כדי להעריך התבגרות באמצעות ניסויים במבחנה. ביום השישי, DCs טופלו עם AECCD (20, 100, 200 ו-400 ug/mL) או LPS (100 ng/mL) למשך 12 שעות. לאחר מכן, DCs נצבעו במולקולות פני השטח ונותחו על ידי ציטומטריית זרימה.
2.5.3. ייצור ציטוקינים על ידי DCs במבחנה
הסופרנטנט של תרבית התא נאסף כדי למדוד את רמת הציטוקינים באמצעות ערכת ELISA או ערכת מבחני זרימה מרובה אנליטים בשיטת CBA. כל שלבי הניסוי בוצעו על פי הוראות היצרן.
2.5.4. תגובה לימפוציטים מעורבים אלוגניים (MLR)
Splenocytes מעכברי BALB/c הושגו באופן אספטי במדיום RPMI- 1640 (Zhang et al., 2018). C57BL/6 DCs בוגר (הבשיל בנוכחות ריכוזים שונים של AECCD או LPS) טופלו מראש ב-50 ug/mL Mitomycin C למשך 60 דקות ב-37 ◦C. לאחר הכביסה עורבבו DCs עם splenocytes ביחס של 1:5 או 1:10 למשך יומיים. שגשוג תאים נקבע על ידי בדיקת MTT.
2.5.5. ניסויים בניטרול מעכבים
כדי לחקור את מסלול NF-κB הקשור ל-TLR4-, DCs שנאספו הועמסו על צלחת 24-באר ולאחר מכן טופלו מראש עם TAK-242 (5 מיקרומטר) או PDTC (5 מיקרומטר) , בהתאמה. לאחר דגירה של 1- שעות, תאים עוררו עם ריכוזים שונים של AECCD (100, 200 ו-400 ug/mL) או LPS (100 ng/mL) למשך 24 שעות. לאחר מכן, רמות הביטוי של מולקולות פני השטח וציטוקינים בסופרנטנטים של התרבות נקבעו לפי השיטות שתוארו לעיל.
3. תוצאות
3.1. ספקטרוסקופיה FTIR
שיאי הספיגה העיקריים של AECCD באיור 1 היו שיאי ספיגה אופייניים של מבנים גליקוזידיים התואמים לרטט מתיחה O-H ב-3342.95 ס"מ- 1. לפס ב-2933.54 ס"מ- 1 הייתה ספיגה חלשה אופיינית של רעידות מתיחה של C-H. השיא ב-1657.39 ס"מ- 1 יוחס לרטט הכיפוף O-H. הספיגה ב-1411.00 cm− 1 יוחסה לתנודות מתיחה של O–H או C–H ו-C–O. השיאים ב-1018.38 ס"מ- 1 הצביעו גם על תנודות של פסים גליקוזידיים של CO ו-C-O-C.

איור 1. ספקטרום FTIR של AECCD.
3.2. תגובת נוגדנים בסרום ספציפית ל-OVA
סרה מהעכברים המחוסנים נבדקו כדי לבדוק את נוכחותם של נוגדנים שנוצרו (IgG, IgG1 ו-IgG2a) נגד OVA. כפי שמוצג באיור 2A, טיטרי IgG בעכברים שחוסנו עם OVA/AECCD-M העלו IgG כולל גבוה יותר (טיטרים: 220,000, 25{{30}}, 000 ו-250,000) ביחס לאלו של קבוצת OVA (טיטרים: 100,000, 100,000 ו-120,000), והיה קרוב לקבוצת Alum (טירים: 250,000, 250,000 ו-270,000) בימים 28, 42 ו-56 לאחר החיסון הראשוני. OVA/AECCD-M/H הגבירו באופן משמעותי את רמות IgG1 בהשוואה לקבוצת OVA (P < 0.05)="" וההבדל="" בין="" קבוצת="" ova/aeccd-m/h="" לקבוצת="" alum="" לא="" היה="" משמעותי="" (p=""> 0.05). OVA/AECCD-M/H גם הגבירו באופן ניכר את רמות IgG2a בהשוואה לקבוצת OVA וקבוצת אלום (איור 2B ו-C) (P <0.05). רמות="" ה-igg2a="" המוגברות="" עשויות="" למנוע="" מחלה="" הדורשת="">חֲסִיןתְגוּבָה.
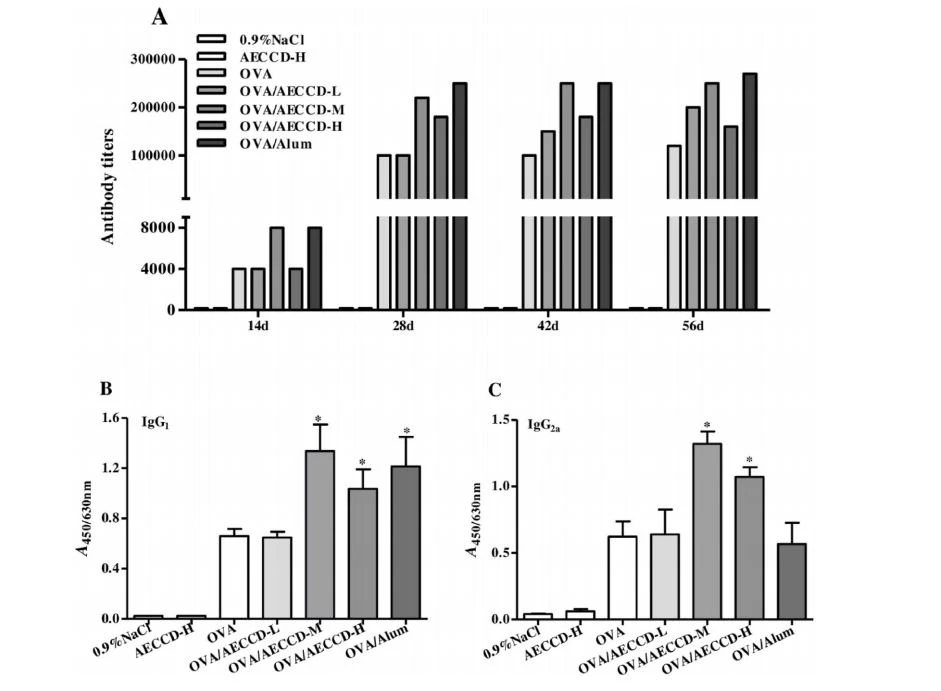
איור 2. טיטר נוגדנים ספציפיים ל-OVA ואיזוטיפים של IgG בסרום. דגימות נסיוב נאספו לאחר חיסונים ראשוניים ומחסנים עבור נוגדנים עם ELISA. (א) טיטרי IgG של סרום מאוחד הוערכו בימים 14, 28, 42 ו-56 לאחר החיסון הראשון. (B-C) IgG1 ו-IgG2a נמדדו ביום 21 לאחר החיסון הראשון. הנתונים מוצגים כממוצע ± SD (n=6). *P < 0.05="" בהשוואה="">
3.3. תגובות חיסוניות סלולריות
שגשוג לימפוציטים בטחול נחקר על ידי בדיקת MTT תחת גירוי עם OVA או OVA{0}}. ניתוח התפשטות גילה כי OVA/AECCD-M הגדילו באופן ניכר את התפשטות הטפלנוציטים לאחר החשיפה ל-OVA, OVA323-339, Con A או LPS ביחס לקבוצת OVA. OVA ו-OVA323-339 שיפרו משמעותית את תגובת ההתפשטות הגבוהה יותר מזו בקבוצת האלום (איור 3) (P <>

איור 3. התפשטות טפלנוציטים על טיפול AECCD in vivo. ספלנוציטים עוררו מחדש עם OVA, OVA323-339, ConA או LPS ונמדדו בשיטת MTT ביום 21 לאחר החיסון הראשון. התפשטות תאים הוצגה כאינדקס גירוי (SI): (A–B) אינדקס גירוי של OVA ו-OVA323-339. (C-D) אינדקס גירוי של ConA ו-LPS. הנתונים מוצגים כממוצע ± SD (n=5). *פ<0.05, **p="" <="" 0.01,="" and="" ***p="" <="" 0.001="" compared="" to="" ova;="" #p="" <="" 0.05="" and="" ##p="" <="" 0.01="" compared="" to="" ova/="">
3.4. הפעלה של תת-קבוצות של תאי T בבלוטות הלימפה והטחול המנקזים
בלוטות לימפה וטחול מעכברים מחוסנים נקצרו כדי לזהות תת-קבוצות של תאי T ביום 21 לאחר החיסון הראשוני. האחוז של תת-קבוצות של תאי T (CD4 פלוס, CD8 פלוס, CD44 פלוס תאי T) מבלוטות הלימפה בקבוצת OVA/AECCD-M היה גבוה משמעותית מזה של קבוצת OVA וקבוצת אלום (איור 4A-D) (P < 0.05).="" האחוזים="" של="" תת-קבוצות="" של="" תאי="" t="" (cd4="" פלוס,="" cd8="" פלוס,="" cd44="" פלוס="" ו-cd62l="" פלוס="" תאי="" t)="" בטחול="" היו="" גבוהים="" משמעותית="" מאלו="" של="" קבוצת="" ova="" (איור="" 4e-j)="" (p=""><0.05). ממצאים="" אלה="" הצביעו="" על="" כך="" ש-="" aeccd="" מקדם="" בתיווך="">חֲסִיןתְגוּבָה.

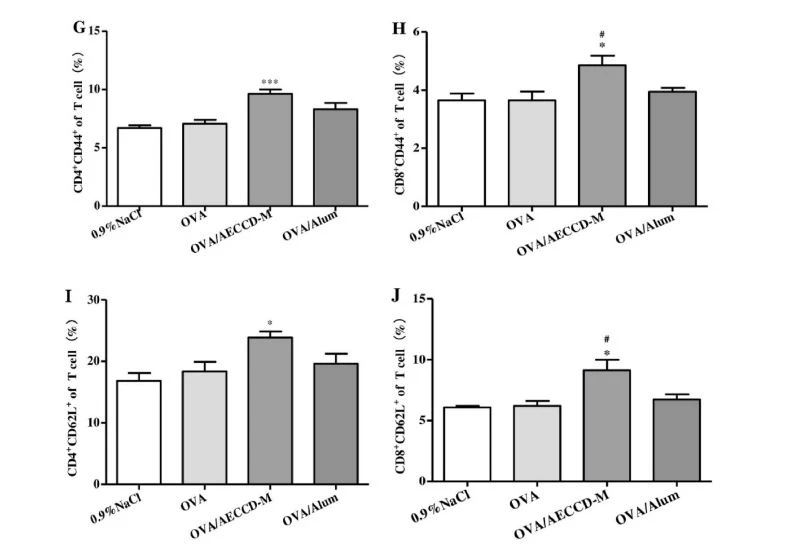
איור 4. רמות של תת-קבוצות של תאי T בבלוטות הלימפה המנקזות והטחול in vivo. ביום ה-21 לאחר החיסון הראשון, נעשה שימוש בתאים מבלוטות הלימפה והטחול כדי לזהות תת-קבוצות של תאי T על ידי ציטומטריית זרימה. (A-D) אחוזים של תאי CD4 פלוס, CD8 פלוס ו-CD44 פלוס T בבלוטות הלימפה. (E–J) אחוזים של תאי CD4 פלוס, CD8 פלוס, CD44 פלוס ו-CD62L פלוס T בטחול. הנתונים מוצגים כממוצע ± SD (n=5). *P < {{10}}.05,="" **p="">< 0.01,="" ו-***p="">< 0.001="" בהשוואה="" ל-ova;="" #p="">< 0.05="" ו-##p="">< 0.01="" בהשוואה="">
3.5. ציטוקינים המופרשים על ידי ספלנוציטים מחודשים in vivo
ציטוקינים Th1/Th2 מהטחול של עכברים מחוסנים נקבעו על ידי צביעה תוך תאית ביום 21 לאחר החיסון הראשון. הרמות של CD4 פלוס IL-4, CD4 פלוס IFN- ו-CD8 פלוס IFN- בקבוצת OVA/AECCD-M היו גבוהות משמעותית מזו שבקבוצת OVA וקבוצת אלום (P < 0="" .05,="" איור="" 5).="" ההבדלים="" הצביעו="" על="" כך="" ש-="" aeccd="" יכול="" לעורר="" תגובות="" th1/th2,="" במיוחד="" בתיווך="" תאי="">חֲסִיןתְגוּבָה.

איור 5. ניתוח ציטוקינים ספציפי לאנטיגן בתאי T in vivo. ספלנוציטים מעכברים מחוסנים נבדקו ביום 21 לאחר החיסון הראשון על ידי צביעת ציטוקינים תוך תאית. (א) אחוזים של CD4 בתוספת IL-4. (B–C) אחוזים של CD4 בתוספת IFN- ו-CD8 בתוספת IFN-. הנתונים מוצגים כממוצע ± SD (n=5). *P < {{10}}.05="" ו-**p="">< 0.01="" בהשוואה="" ל-ova;="" #p="">< 0.05="" בהשוואה="">
3.6. התבגרות DC וטרגס in vivo
הפעלת DC יכולה ליזום חסינות אדפטיבית. ההשפעות של AECCD על התבגרות DC בעכברים מחוסנים הוערכו ביום 3 לאחר החיסון הראשון. OVA/AECCD-M גרמו לרמות הגבוהות ביותר של CD40, CD80, CD86 ו-MHCII ב-DCs ביחס לקבוצת OVA, וההבדל בין OVA/AECCD-M הקבוצה וקבוצת אלום היו מובהקים (איור 6A-D) (P <0.05). התדירות="" של="" cd4="" פלוס="" cd25="" פלוס="" foxp3="" פלוס="" tregs="" בקבוצת="" ova/aeccd-m="" הייתה="" נמוכה="" באופן="" דרמטי="" מזו="" בקבוצת="" ova="" (איור="" 6e)="" (p=""><0.05). נתונים="" אלה="" העלו="" כי="" aeccd="" יכול="" להפעיל="" dcs="" ולהוריד="" את="" תדר="">

איור 6. השפעות של AECCD על התבגרות DC ו-Tregs in vivo. ספלנוציטים מעכברי ICR שימשו לזיהוי מולקולות קוסטימולטוריות ב-DCs וב-Tregs ביום 3 או 21 לאחר החיסון הראשון. (א-ד) אחוזים של CD40, CD86, CD80 ו-MHCII ב-CD11c בתוספת DC. (ה) אחוזים של CD4 פלוס CD25 פלוס Foxp3 פלוס Tregs. הנתונים מוצגים כממוצע ± SD (n {{10}}). *P < 0.05="" ו-**p="">< 0.01="" בהשוואה="" ל-ova;="" #p="">< 0.05="" ו-##p="">< 0.01="" בהשוואה="">
3.7. מבחני ציטוטוקסיות וזיהום אנדוטוקסין
לאחר הטיפול בריכוזים שונים של AECCD במשך יומיים, נעשה שימוש בתאים מ-DCS וספלנוציטים של עכברים כדי לקבוע את הציטוטוקסיות הפוטנציאלית עם ערכת CCK-8. לא הייתה תגובת שגשוג מעוכבת משמעותית בכדאיות התא של DCs וספלנוציטים בהשוואה לזו של קבוצות הביקורת (איור 7A-B) (P > 0.05). תוצאות אלו הראו כי AECCD בריכוז של 10-1600 ug/mL לא הראתה ציטוטוקסיות משמעותית ל-DCs וספלנוציטים בהשוואה לביקורת (P > 0.05). לפיכך, הריכוז של AECCD בניסויים הבאים נקבע להיות מתחת ל-1600 ug/mL.
כדי להוציא את ההפרעה של זיהום אנדוטוקסין בהשפעות של AECCD על הפעלת DC, נעשה שימוש ב-PMB, אנטיביוטיקה מוכרת בשל השפעתה מנטרלת LPS, כדי לא לכלול זיהום אנדוטוקסין (Morrison and Jacobs, 1976). כפי שמתואר באיור. 7C–F, CD40, CD80, CD86 או MHC-II רמות הביטוי ב-DCs שטופלו ב-AECCD בנוכחות PMB לא הראו שינוי משמעותי ( P > 0.05). עם זאת, נצפתה ירידה דרמטית ברמות הביטוי CD40, CD80 CD86 ו-MHC-II ב-DCs שטופלו ב-LPS בנוכחות PMB (P <0.001). תוצאות="" אלו="" הוכיחו="" כי="" aeccd="" היה="" נקי="" מזיהום="">
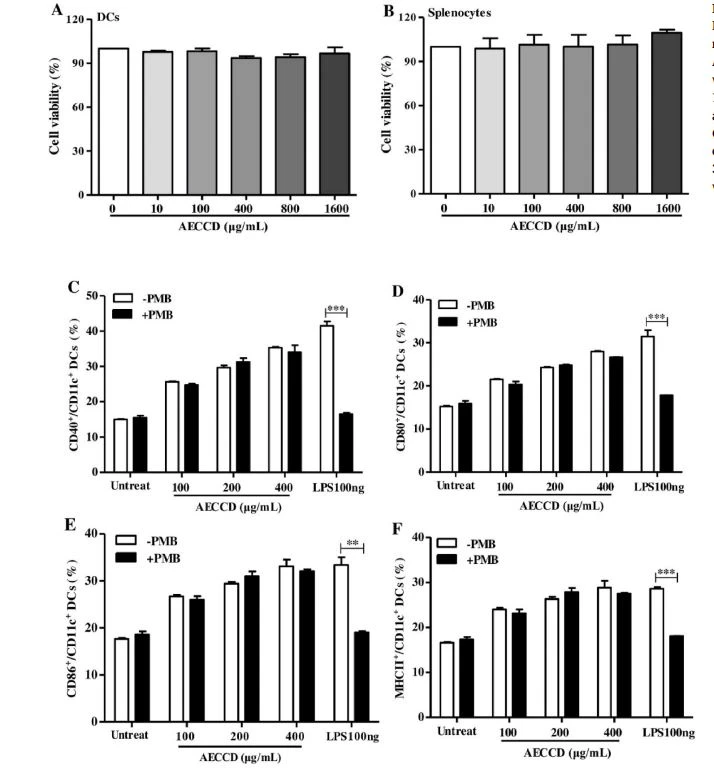
איור 7. ציטוטוקסיות והשפעות של PMB על התבגרות DC המושרה על AECCD. (A-B) DCS וספלנוציטים של עכברים תורבו בנוכחות AECCD למשך יומיים כדי לקבוע את כדאיות התא בשיטת MTT. (C-F) DCs הודגרו במשך 12 שעות עם AECCD או LPS שטופלו מראש בנוכחות/היעדר PMB למשך 60 דקות. נקבעו האחוזים של CD40, CD80, CD86 ו-MHCII ב-CD11c פלוס DC. הנתונים מוצגים כאמצעים ± SD (n =3). **P < 0.01="" ו-***p="">< 0.001="" בהשוואה="" לקבוצה="" עם="">
3.8. התבגרות פנוטיפית והפעלה תפקודית של DCs במבחנה
בהתבסס על ניסויי חיסון לעיל, ההבשלה הפנוטיפית של DCs נחקרה עוד לאחר הטיפול ב- AECCD במבחנה. ביום 6, DCs לא בשלים עוררו עם ריכוז נתון של AECCD או LPS כדי לנתח מולקולות פני השטח. התבגרות תאים המושרה על ידי AECCD המאופיינת בעלייה משמעותית באחוזים של CD40, CD80 CD86 ו-MHC II באופן תלוי מינון (P <0.001, איור="" 8a-d).="" הבשלה="" פנוטיפית="" דומה="" של="" dcs="" נצפתה="" גם="" לאחר="" הגירוי="" עם="" 100="" ng/ml="" lps.="" נתוני="" הניתוח="" גילו="" כי="" aeccd="" שיפר="" את="" התבגרות="">
מהתוצאות לעיל, AECCD שיפר את ההבשלה הפנוטיפית של DCs. על מנת לבחון את ההשפעה של AECCD על תפקוד DC במבחנה, היכולת של DCs שטופלו ב-AECCD לעורר שגשוג תאי T אלוגני ב-MLR ביחס DC-splenocyte של 1:5 או 1:10 הייתה חקר. DCs שטופלו בריכוזים שונים של AECCD גרמו לשגשוג משמעותי של תאי T בהשוואה ל-DCs לא מטופלים (איור 8E-F) (P < 0.001).="" התבגרות="" dc="" יכולה="" לגרום="" לייצור="" של="" ציטוקינים.="" לאחר="" מכן,="" הסופרנטנטים="" של="" dcs="" שטופלו="" ב-="" aeccd="" או="" lps="" זוהו="" על="" ידי="" ערכת="" elisa.="" הרמות="" של="" il-12="" ו-tnf-="" בסופרנטנטים="" של="" dcs="" עלו="" באופן="" דרמטי="" באופן="" תלוי="" מינון="" (p="">< 0.001,="" איור="">

איור 8. התבגרות פנוטיפית והפעלה תפקודית של DCs בטיפול ב-AECCD במבחנה. (א-ד) ביום 6, DCs טופלו בריכוז נתון של AECCD או LPS במשך 12 שעות. תאים נצבעו בנוגדנים ונקבעו על ידי ציטומטריית זרימה. עוצמת הקרינה הממוצעת (MFI) של CD40, CD80, CD86 ו-MHCII ב-CD11c פלוס DCs. (E–F) C57BL/6 DCs שטופלו בריכוזים שונים של AECCD או LPS עורבבו עם splenocytes מעכברי BALB/c ביחס של 1:5 או 1:10 ב-MLR למשך יומיים. שגשוג תאים נקבע על ידי בדיקת MTT. (G–H) סופרנטנטות התרבות של DCs נבדקו עבור IL-12 ו-TNF-a על ידי ערכת ELISA. הנתונים מוצגים כאמצעים ± SD (n =3). *P < 0.05,="" **p="">< 0.01="" ו-***p="">< 0.001="" בהשוואה="" ל-dcs="" לא="" מטופלים;="" #p="">< 0.05="" בהשוואה="">
3.9. TLR4, קולטן עבור AECCD על DCs
DCS יכול ליזום איתות סלולרי על ידי קולטני ממברנה. ללקבועהתפקיד של TLR4 בהשתתפות בהבשלת DC שטופלה ב-AECCD, לאחר הטיפול המקדים עם מעכב TLR4 TAK-242, DCs היו מגורים עם ריכוז נתון של AECCD, ולאחר מכן סטטוס ההפעלה של DCs נבדק על ידי ציטומטר זרימה . רמות הביטוי של ציטוקינים בסופרנטנטים בתרבית נותחו על ידי ערכת מבחני זרימה רב-אנליטית. ה-Upregulation של CD40, CD80, CD86 ו-MHC-II המושרה על ידי AECCD עוכב באופן משמעותי על ידי חסימת מסלולי TLR4 (P <0.01, איור="" 9a-d).="" יתרה="" מכך,="" בהשוואה="" לבקרה="" לא="" מטופלת,="" לחסימת="" tlr4="" עם="" tak-242="" הייתה="" השפעה="" מעכבת="" משמעותית="" יותר="" על="" הייצור="" של="" ifn-,="" tnf-="" ו-il-6="" (p=""><0.01, איור="" 9e-g)="">
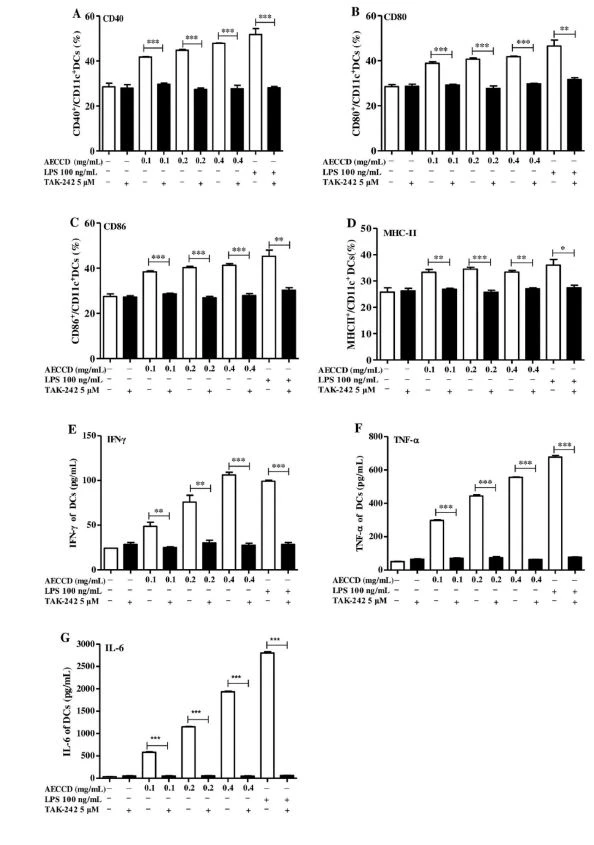
איור 9. הפעלת איתות TLR4 ב-DCs שטופלו ב-AECCD. לאחר ש-DCs לא בשלים טופלו ב-AECCD בהיעדר או נוכחות של TAK-242 למשך 12 שעות, ההבשלה הפנוטיפית נבדקה על ידי ציטומטר זרימה ורמות הציטוקינים בסופרנטנטים היו בשיטת CBA. (א-ד) אחוזים של CD40, CD80, CD86 ו-MHCII ב-CD11c בתוספת DC. (E–G) רמות של IFN-, TNF- ו-IL-6. הנתונים מוצגים כאמצעים ± SD (n=3). **P < 0.01=""><0.001 compared="" to="" the="" group="" with="">
3.10. הפעלת DC על ידי AECCD באמצעות מסלול NF-κB הקשור ל-TLR4-
כדי לחקור האם הביטויים של מולקולות פני השטח וציטוקינים של DCs שטופלו ב-AECCD היו מווסתים על ידי NF-κB לאחר DCs לא בשלים שטופלו מראש עם מעכב NF-KB PDTC עוררו עם AECCD במשך 12 שעות, רמות הביטוי של מולקולות וציטוקינים קוסטימולטוריות נמדדו על ידי ציטומטר זרימה. הרמות של CD40, CD80 CD86 ו-MHC-II המושרה על ידי AECCD ירדו באופן משמעותי בהשוואה לבקרה הלא מטופלת על ידי חסימת מסלולי NF-κB עם מעכבים מתאימים (P < 0.001,="" איור="" 10a–d).="" במקביל,="" הביטוי="" של="" ifn-="" ,="" tnf-="" ו-il-6="" גם="" עוכב="" באופן="" משמעותי="" על="" ידי="" pdtc="" (p=""><0.05, איור="">

איור 10. מעורבות של NF-κB בהפעלת DC המושרה על ידי AECCD. DCs טופלו עם AECCD בהיעדר או נוכחות של PDTC במשך 24 שעות. (א-ד) האחוזים של CD40, CD80, CD86 ו-MHCII ב-CD11c פלוס DCs נקבעו על ידי ציטומטריית זרימה. (E–G) הרמות של IFN-, TNF- ו-IL-6 בסופרנטנט נקבעו בשיטת CBA. הנתונים מוצגים כממוצעים ± SD (n=3).*P <0.05, **p=""><0.01 ו-***p=""><0.001 בהשוואה="" לקבוצה="" עם="">
4. דיון
נכון לעכשיו, פוליסכרידים שונים מ-TCM נחקרו כעזרי חיסונים לבני אדם ובעלי חיים (Sun et al., 2018; Rey-Ladino et al., 2011). במחקר זה, ההשפעות המווסתות את מערכת החיסון של AECCD ומנגנון ההפעלה העיקרי של DCs נחקרו in vivo ו-in vitro על ידי סדרה של ניסויים על מנת להעריך את ההסתגלותחֲסִיןתְגוּבָהנגד OVA ומצב ההפעלה של DCS. ניסויים in vivo הצביעו על כך ש-AECCD קידם בצורה יוצאת דופן את הייצור של איזוטיפים של IgG ו-IgG ספציפיים ל-OVA, הגביר את התפשטות הספלנוציטים והשראת הפעלה של תאי T וציטוקינים (IL-4/IFN-). חוץ מזה, AECCD שיפרה את התבגרות DC והציגה ירידה ב-Tregs. ממצאים אלו הצביעו על כך שתפקוד AECCD כחומר אדג'ובנט יעיל התממש על ידי קידום התבגרות DC ועיכוב Tregs. ניסויים במבחנה הצביעו על כך ש-AECCD מקדם הבשלה פנוטיפית של DCs, קטע ציטוקינים ופעילות אלוסטימולטורית באמצעות מסלול NF-κB הקשור ל-TLR4-. תוצאות ניסוי אלו הצביעו על כך של-AECCD היה פוטנציאל משמעותי כממריץ לשיפור מערכת החיסון.
לכל אדג'ובנט מאפיינים חיסוניים ייחודיים נגד אנטיגנים שונים, מה שמצביע על כך שלעזרי יש פוטנציאל ליישום במחלות שונות. ראשית, תכונות האדג'ובנטים של ניהול משותף של AECCD עם OVA נבדקו על ידי קביעת השפעותיהם על אדפטיביתחֲסִיןתְגוּבָהבעכברים. מחקרים רבים הראו שהפעילויות המעוררות את מערכת החיסון היו פרופורציונליים ישירות למינון בטווח מסוים (Li et al., 2020; Reed et al., 2020; Zhang et al., 2017). באופן דומה, במחקר, ניתוח הנוגדנים והאיזוטיפ גילה כי AECCD בטווח מינון מסוים הגביר את תגובות IgG, IgG1 ו-IgG2a ספציפיות ל-OVA וכי המינון הבינוני של AECCD היה המינון האופטימלי. בניסויים שלאחר מכן, חקרנו בעיקר את ההשפעה המעוררת של AECCD במינון בינוני אופטימלי. המינון הבינוני של AECCD הגביר באופן משמעותי את תגובת התפשטות הטפלנוציטים בעכברים מחוסנים, מה שמעיד על כך ש- AECCD מקדם תאיחֲסִיןתגובותנגד OVA. תוצאות אלו הצביעו על כך ש- AECCD שיפר הן את ההומור והן הסלולריחֲסִיןתגובות, שהיו קשורים לפוטנציאל אדג'ובנטי.
הפעילות המשמעותית המתקבלת של תאי T עשויה להיות תורמת למיגור המחלה. במהלך אחֲסִיןתְגוּבָה, תאי T מופעלים עשויים להגיע לרקמות לימפואידיות משניות, כולל טחול ובלוטות לימפה (Steinman, 2012). המינון הבינוני של AECCD שיפר ביעילות את יעילות החיסון מכיוון שהוא יכול לשפר משמעותית את תגובת תאי ה-CD4, CD8, CD44 ו-CD62L בניקוז בלוטות הלימפה והטחול. תאי CD8 T פעילים תיווכו את מיגור הפתוגנים על ידי הפרשת IFN-. תאי CD4 T שהתרבו התמיינו לתאי Th1 ותאי Th1. תאי Th1 הפרישו ציטוקין Th1 כדי לעורר שגשוג לימפוציטים ותאי Th2 הפרישו ציטוקין Th2 כדי לשפר את ייצור הנוגדנים (Seder et al., 2008). במחקר, הרמות של CD4 פלוס IL-4, CD4 פלוס IFN- ו-CD8 פלוס IFN- עלו על ידי AECCD במינון בינוני. AECCD גרמה לתגובת Th1/Th2 מאוזנת והנחה אתחֲסִיןתְגוּבָהעל ידי שינוי רשת הציטוקינים.
תוסף צריך לעורר חסינות ספציפית ולשלוט על התוצאה שלחֲסִיןתְגוּבָהעל ידי ויסות מצב DCs בנקודות רבות (Carrera Silva et al., 2013). הביטוי של מולקולות פני השטח על DCs הוא אינדיקטור מכריע להערכת התבגרות DC והוא מתאם בדרך כלל עם התמיינות לימפוציטים T (Steinman, 2012). במחקר זה, AECCD שיפר את הביטוי של מולקולות קוסטימולטוריות והקל על התבגרות DC כאשר הוא שימש כחומר אדג'ובנט נגד OVA. זו עשויה להיות אחת הדרכים שבהן AECCD קידמה הומורלית ותאיתחֲסִיןתגובות. בינתיים, AECCD הפחיתה גם את התדירות של CD4 פלוס CD25 פלוס Foxp3 פלוס Tregs, מה שסיפק חסינות מאוזנת לאחר חיסון. התוצאות שלנו תמכו בממצאים אחרונים לפיהם פוליסכרידים שונים מ-TCM היו המווסתים של התבגרות DC (Bo et al., 2019; Li et al., 2015; Zhu et al., 2016).
הפעלה של אדפטיביחֲסִיןתגובותעל ידי אדג'ובנטים של פוליסכרידים מתווכת בעיקר באמצעות זיהוים על ידי קולטנים ספציפיים של DCs (Akira, 2004). DCs המופעלים דרך מסלולים הקשורים ל-TLR4- יכולים להפריש אימונומודולטורים שונים כמתווך קריטי נגד זיהומים (Akira, 2007). לכן, בניסויים הבאים, חקרנו מקדים את המנגנון המולקולרי של ההשפעה המעוררת של AECCD על DCs במבחנה. על מנת לבחון את הציטוטוקסיות של AECCD, תחילה נקבעה כדאיות התא של DCs וספלנוציטים מעכברים. AECCD ב-10-1600 ug/mL לא הראה ציטוטוקסיות ל-DCs וספלנוציטים. כדי לשלול זיהום LPS, טיפלנו מראש ב- AECCD עם PMB. רמות הביטוי של CD40, CD80 CD86 ו-MHC-II ב-DCs שטופלו ב-AECCD לא ירדו, אך PMB עיכב ביעילות את הביטוי של מולקולות קוסטימולטוריות ב-DCs שטופלו ב-LPS. זה הוכיח כי AECCD היה נקי מזיהום אנדוטוקסין. לאחר מכן, סטטוס ההפעלה של DCs נחקר עוד יותר. בדומה ל-DCs שטופלו ב-LPS, באופן תלוי מינון, DCs שטופלו ב-AECCD העלו את רמות ה-CD40, CD80 CD86 ו-MHC II, כמו גם את ייצור הציטוקין הפרו-דלקתי, שהיה פרמטר של התבגרות תפקודית של DCs. ב-MLR, יכולת ההתפשטות של תאי T אלוגניים הוערכה ב-DCs שטופלו ב-AECCD. AECCD יכול להפעיל ולהפעיל תאי T אלוגניים. DCs טופלו תחילה מראש ב- Mitomycin C ולאחר מכן נשטפו ביסודיות כדי להסיר מגיב זה, כך שההשפעות של AECCD על DCs לא היו מיוחסות לפעילות מיטוגנית. נתונים ניסויים גילו כי ניתן לייחס התבגרות פנוטיפית של DC והפעלה תפקודית לגירוי מ- AECCD.
מספר פוליסכרידים TCM עשויים לעורר התבגרות DCs באמצעות TLR4. NF-κB כחבר במסלול במורד הזרם הקשור TLR4-ממלא תפקיד חשוב בוויסות הבשלה פנוטיפית ותפקודית של DCs והשראת ביטוי של גנים שונים המעורבים בחֲסִיןתגובות(Qi et al., 2016; Re and Strominger, 2001; Wei et al., 2016; Zhu et al., 2013). באמצעות ניסויים במבחנה, מצאנו ש-AECCD מקדם את הבשלת DC וכי TAK-242 (מעכב TLR4) ו-PDTC (מעכב NF-κB) הפחיתו את רמות הביטוי של CD40, CD80, CD86 ו-MHC -II ורמות ההפרשה של IFN-, TNF- ו-IL-6 ב-DCs שטופלו ב-AECCD, ממצאים אלו הצביעו על כך ש-TLR4 ו-NF-κB היו מעורבים בהפעלת DC ובהפרשת ציטוקינים המושרה על ידי AECCD. תוצאות אלו היו עקביות עם מחקרים שדווחו בעבר מכיוון ש- AECCD כתוסף שיפר את המיקוד של אנטיגן אל DCs.
לסיכום, התוצאות שלנו הראו ש- AECCD גרמה לתגובות עמידות ו-Th1/Th2, במיוחד בתיווך תאי Tחֲסִיןתְגוּבָהנגד OVA. DCs שהופעלו על ידי AECCD באמצעות מסלול NF-κB4-מתווך TLR, ובכך משפרים את הייצור של אימונומודולטורים ושגשוג תאי T אלוגניים. AECCD עשוי לשמש כתוסף יעיל בפיתוח חיסונים. עם זאת, ניתוח רכיב מדויק יבוצע כדי לקבוע איזה רכיב ב-DCs המופעלים על ידי AECCD. עם התמקדות במנגנונים לגבי האופן שבו AECCD מגבירה את האימונוגניות, כולל אופטימיזציה של פורמולציות אדג'ובנטיות ודרך מתן החיסון, נחקור עוד את הרכיבים האימונומודולטורים ואת תכונות האדג'ובנטים הספציפיים של AECCD לצורך תכנון תוספי חיסון יעילים נגד מחלות זיהומיות.
Cistanche הטבות דזרטיקהלקדם אחֲסִיןתְגוּבָה
תרומות מחבר
רכישה, ניתוח ופרשנות של נתונים: Shuangshuang Feng, Xiumei Yang, Xiang Weng. כתיבת טיוטה מקורית: Shuangshuang Feng, Xiang Weng.
רכישת מימון:אייליאן ג'אנג.
חֲקִירָה:אייליאן ג'אנג.
מֵתוֹדוֹלוֹגִיָה:אייליאן ג'אנג, בן וואנג.
הַשׁגָחָה:אייליאן ג'אנג.
הצהרת עניין מתחרה
לכותבים אין ניגוד עניינים הקשור למחקר זה.
תודות
עבודה זו נתמכה על ידי הקרן הלאומית למדעי הטבע של סין [מספרי המענק 31960164 ו-31660259] למממנים לא היה תפקיד בתכנון מחקר, איסוף נתונים וניתוח, החלטה לפרסם, הכנה או בכתב היד.
המחברים מודים לפרופ' Xingguo Zheng ול-Jiang He (Urumqi, סין) על האדיבות לספק חומרים וזיהוי.
הפניות
Akira, S., 2004. משפחות קולטני אגרה: מבנה ותפקוד. סמינר. אימונול. 16, 1–2.
Akira, KS, 2007. איתות ל-NF-κB על ידי קולטנים דמויי אגרה. טרנדים מול. Med. 18, 156–163.
Banchereau, J., Steinman, RM, 1998. תאים דנדריטים ובקרה על חסינות. טבע 392, 245–252.
Bo, R., Liu, Z., Zhang, J., Gu, P., Ou, N., Sun, Y., Hu, Y., Liu, J., Wang, D., 2019. מנגנון של ליציום ברברום polysaccharides ליפוזומים על הפעלת תאים דנדריטים עכברים. פחמימות. Polym. 205, 540–549.
Cao, P., Wu, S., Wu, T., Deng, Y., Zhang, Q., Wang, K., Zhang, Y., 2020. התפקיד החשוב של פוליסכרידים מרפואה סינית מסורתית-ניקוי ריאות ומרתח ניקוי רעלים נגד מגיפת COVID-19. פחמימות. Polym. 240,m116346
Carrera Silva, EA, Chan, PY, Joannas, L., Errasti, AE, Gagliani, N., Bosurgi, L., Jabbour, M., Perry, A., Smith-Chakmakova, F., Mucida, D., Cheroutre, H., BurstynCohen, T., Leighton, JA, Lemke, G., Ghosh, S., Rothlin, CV, 2013. T cell-derived
חלבון S מפעיל איתות של קולטן TAM בתאים דנדריטים כדי לשלוט בגודל שלחֲסִיןתְגוּבָה. חסינות 39, 160–170.
ועדת הפרמקופיה הסינית, 1992. משרד הבריאות הסיני לרפואת צמחי מרפא, כרך ראשון. עיתונות ועדת הפרמקופיה הסינית, בייג'ינג, עמ'. 1.
Dong, Q., Yao, J., Fang, J., Ding, K., 2007. אפיון מבני ופעילות אימונולוגית של שני פוליסכרידים הניתנים למיצוי מים קרים מ.CistancheמדבריתYC Ma. פחמימות. מילון 342 (10), 1343–1349.
Dubois, M., Gilles, K., Hamilton, JK, Rebers, PA, Smith, F., 1951. שיטה קולורימטרית לקביעת סוכרים. טבע 168, 167.
Fu, Z., Fan, X., Wang, X., Gao, X., 2018.Cistanchesהרבה: סקירה של תכונת הכימיה, הפרמקולוגיה והפרמקוקינטיקה שלו. J. Etnopharmacol. 219, 233–247.
Giuseppe, DG, Rino, R., Didierlaurent, AM, 2018. קורלציות של אדג'ובנטיות: סקירה על אדג'ובנטים בחיסונים מורשים. סמינר. אימונול. 39, 14–21.
Inaba, K., Inaba, M., Romani, N., Aya, H., Deguchi, M., Ikehara, S., Muramatsu, S., Steinman, RM, 1992. יצירת מספר רב של תאים דנדריטים מעכבר תרביות מח עצם בתוספת גורם מגרה של מושבות גרנולוציטים/מקרופאגים. J. Exp. Med. 176, 1693–1702.
Li, P., Wang, F., 2015. פוליסכרידים: מועמדים לתוספי חיסון מבטיחים. Drug Discov Ther 9, 88–93.
Li, X., Zhao, R., Li, H., De, Z., Wu, H., 2012. דה-פרוטאין של פוליסכרידים מהסטיגמה מיידיס בשיטת Sevag. עו"ד מאטר. מילון 340, 416–420.
Li, J., Li, J., Zhang, F., 2015. ההשפעות החיסוניות של רפואת הצמחים הסינית על הבשלה ותפקוד של תאים דנדריטים. J. Etnopharmacol. 171, 184–195.
Li, T., Zhang, L., Jin, C., Xiong, Y., Cheng, YY, Chen, K., 2020. תמצית פרחי הרימון מווסתת באופן דו-כיווני את השגשוג, ההתמיינות והאפופטוזיס של 3T3- תאי L1 באמצעות ויסות של ביטוי PPAR המתווך על ידי מסלול האיתות PI3K-AKT. ביומד. פרמקוטר. 131, 110769.
Morrison, DC, Jacobs, DM, 1976. קישור של polymyxin B לחלק הליפיד A של ליפופוליסכרידים חיידקיים. אימונוכימיה 13, 813–818.
Park, MJ, Ryu, HS, Kim, JS, Lee, HK, Kang, JS, Yun, J., Kim, SY, Lee, MK, Hong, JT, Kim, Y., 2014. Platycodon grandiflorum polysaccharide גורם לתא דנדריטי התבגרות באמצעות איתות TLR4. Food Chem. טוקסיקול. 72, 212–220.
Qi, C., Guo, Y., Zhou, W., Zhang, Y., 2016. פוליסכרידים אימונוסטימולטוריים הקשורים לקולטן דמויי אגרה: מבנה ראשוני, יחסי פעילות ומודלי אינטראקציה אפשריים. פחמימות. Polym. 149, 186–206.
Re, F., Strominger, JL, 2001. קולטן דמוי אגרה 2 (TLR2) ו-TLR4 מפעילים באופן דיפרנציאלי תאים דנדריטים אנושיים. ג'יי ביול. Chem. 276, 37692–37699.
ריד, SG, Orr, MT, Fox, CB, 2013. תפקידי מפתח של אדג'ובנטים בחיסונים מודרניים. נאט. Med. 19, 1597–1608.
ריד, SG, Tomai, M., Gale, MJ, 2020. אופקים חדשים באדג'ובנטים לפיתוח חיסונים. Curr. דעה. אימונול. 65, 97–101.
Rey-Ladino, J., Ross, AG, Cripps, AW, Mcmanus, DP, Quinn, R., 2011. מוצרים טבעיים והחיפוש אחר תוספי חיסון חדשים. חיסון 29, 6464–6471.
Schijns, V., Fernandez ´ Ejada, A., Barjaktarovi, A., Bouzalas, I., Lavelle, EC, 2020. Modulation ofחֲסִיןתגובותשימוש באדג'ובנטים כדי להקל על חיסון טיפולי. אימונול. רפ' 296, 169–190.
סדר, RA, Darrah, PA, Roederer, M., 2008. איכות תאי T בזיכרון והגנה: השלכות על עיצוב חיסון. נאט. כומר אימונול. 8, 247–258.
Steinman, RM, 2012. החלטות לגבי תאים דנדריטים: עבר, הווה ועתיד. אננו. כומר אימונול. 30, 1–22.
Sun, B., Yu, S., Zhao, D., Guo, S., W, X., Zhao, K., 2018. פוליסכרידים כעזרי חיסון. חיסון 36, 5226–5234.
Tian, H., Liu, Z., Pu, Y., Bao, Y., 2019. השפעות אימונומודולטוריות המופעלות על ידי הפוליסכרידים של Poria Coco באמצעות איתות TLR4/TRAF6/NF-κB במבחנה ובאינבו. ביומד. פרמקוטר. 112, 108709.
Wei, W., Xiao, HT. J. Etnopharmacol. 179, 243–252.
Zhang, A., Yang, Y., Wang, Y., Zhao, G., Yang, X., Wang, D., Wang, B., 2017. תמציות מימיות אדג'ובנטיות מ-Artemisia rupestris L.חֲסִיןתגובותדרך מסלול האיתות TLR4. חיסון 35, 1037–1045
Zhang, A., Yang, X., Li, Q., Yang, Y., Zhao, G., Wang, B., Wu, DC, 2018. פעילות אימונוסטימולטורית של פוליסכרידים הניתנים לחילוץ במים.Cistancheמדבריתכתוסף צמחי במבחנה ובאינבו. PloS One 13, e0191356.
Zhao, B., Lian, J., Wang, D., Li, Q., Zhang, A., 2019. הערכה של תמציות מימיות שלCistancheמדבריתהוא תוסף פוליסכריד לחיסון נגד שפעת עונתית בעכברים בוגרים צעירים. אימונול. Lett. 213, 1–8.
Zhou, L., Liu, Z., Wang, Z., Yu, S., Long, T., Zhou, X., Bao, Y., 2017. פוליסכרידים של אסטרגלוס מפעילים השפעות אימונומודולטוריות באמצעות 4-תיווך TLR מסלולי איתות תלויי MyD88- במבחנה ובאינבו. Sci Rep-UK 7, 44822.
Zhu, J., Zhang, Y., Shen, Y., Zhou, H., Yu, X., 2013. Polysaccharides Lycium barbarum מעוררים קולטן דמוי אגרה 2- ו4-מתווכת פנוטיפית ופונקציונלית הבשלה של תאים דנדריטים עכברים באמצעות הפעלה של NF-κB. מול. Med. רפ' 8, 1216–1220.
Zhu, N., Lv, X., Wang, Y., Li, J., Liu, Y., Lu, W., Yang, L., Zhao, J., Wang, F., Zhang, LW, 2016 השוואה בין השפעות אימונו-וויסות של פוליסכרידים משלושה צמחי מרפא טבעיים וספיגה תאית בתאים דנדריטים. Int. ג'יי ביול. מקרומול. 93, 940–951.


